Дисертационен труд за присъждане на образователнаи научна степен „Доктор” на Николай Цаков. Научен ръководител: проф.д-р Дичо Димов, д.м.н
Увод
Усетът на обонянието е едно от основните сетива, както за хората, така и за животните. Обонянието позволява на гръбначните и на другите организми с обонятелни рецептори да идентифицират храна, сексуални партньори, хищници. Мирисната информация е източник едновременно и на чувствени удоволствия (мирис на цветя и парфюми), а така също и на предупреждаващи сигнали за опасност (напр. развалена храна, пожар, опасни химикали). Често пъти на обонятелните разстройства не се гледа сериозно, тъй като за тях се приема, че са свързани с „низшите сетива” – тези, отговорни за емоционалния живот, за разлика от „висшите сетива”, обслужващи интелекта (Schiffman (189), Van Toller (215)). Съвременният нисък статус на обонянието е резултат от преоценката на сетивата от философите и учените на 18 и 19 век. Обонянието било разглеждано, като нискоразрядно, примитивно, дивашко и животинско, тъй като то е от тези сетива при които контрола е загубен. Всяко вдишване изпраща върху рецепторите на носа въздух натоварен с молекули носещи потенциала, неприятна и нецензурирана информация към мозъка.
Хипократ ( 4 век пр.н.е.) първи предполага, че болестите биха могли да се диагностицират по отделяните миризми (телесната миризма). Авицена ( 10 век.н.е.) изследвал миризмата на урината за да открива болести (Zattore (230)). Наскоро започнаха да се използват кучета за откриване на ракови клетки в тялото на човека (Wise (222)).
Обикновено не си даваме сметка за обонянието, но когато го загубим сякаш сме оглушали или ослепели. Обонянието е един от важните начини чрез които заобикалящата среда комуницира с нас. То играе важна роля при нашето взаимодействие с околната среда, поради което оказва директно влияние върху човешкото поведение и може да доведе до значително снижение в качеството на живот (Деспотов (5), Estrem (65)).
При оценката на пациент, който би могъл да има възможно обонятелно нарушение – „хипосмия”, клиницистът разполага с няколко инструмента за това. Анамнеза, обективен преглед и изследване на обонянието (тук може да се добави и изследване на вкуса). По този начин може да се достигне повечето от информацията за етиологията на възможна хипосмия.
Алергичният ринит е сред десетте най-чести причини за посещение на личния лекар (Benninger (27), Европейски консенсус за риносинутитите (66)). Въпреки, че обикновено не е тежко заболяване, той в значителна степен засяга социалния живот на индивидите, засяга представянето в училище и работоспособността (Stammberger (201), Vuurman (219)). Нещо повече, средствата изразходвани за лечението на ринита са значителни. Възможната връзка между алергичния ринит и другите заболявания, като астма, синуити, среден отит, носна полипоза, инфекции на горните и долните дихателни пътища, трайни разстройства на обонятелните способности и дори ортодонтски аномалии, трябва да се взема предвид при социоикономическото влияние на болестта (Banerji (24), Fokkens и Lund (74), Landis, Giger (117), Settipane, Chafee (194), Seybt, Mc Mains (195)).
Цел и задачи
Да се установи състоянието на обонятелната функция при пациенти (деца и възрастни) с доказани алергични заболявания на горните и долните дихателни пътища по време на и извън алергичните сезони. За да осъществим тази цел си поставихме следните задачи:
- Да се установи се връзката между тежестта и продължителността на алергичното заболяване на носа и възможните увреждания на обонятелната система.
- Да се определи ролята на рутинното обонятелно изследване.
- Да се създадат критерии за количествена оценка на обонянието за всички одоранти, която да спомага за по-лесното класифициране на пациентите по обонятелни нарушения и за нуждите на експертната оценка.
- Да се предложи осъвременяване на референтните нормални стойности на относителните обонятелни прагове, определени за българския олфактометър.
Литературен обзор
Анатомия на обонятелния анализатор
Обонятелния анализатор се състои от периферна (рецепторна) част и от централни пътища и отдели.
Рецепторна част на обонятелния анализатор
Носната лигавица на човека е разделена функционално и морфологично на две зони: дихателна (regio respiratporia) и обонятелна (region respiratoria) (Ценев (10)). Рецепторната обонятелна зона се намира в горната част на носната кухина. Тя е ограничена от горна носна конха, срещуположната част на носната преградка и решетъчната кост на черепа (фиг. 1). Обонятелната зона във всяка една от носните половини обхваща около 2,5 кв.см и съдържа приблизително 50 000 000 първични сензорни рецепторни клетки (обонятелни неврони) (Ценев (10)).
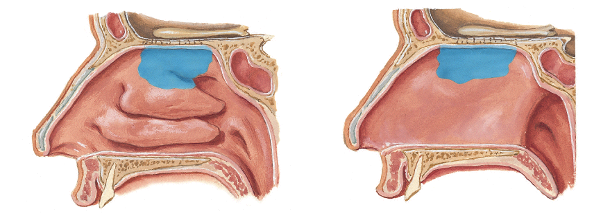
Слизестият епителоподобен слой, покриващ обонятелната зона се отличава от респираторния по жълтокафявия цвят, дължащ се на пигмента, включен в обонятелните сетивни клетки. Този епител, заедно с подлежащия съединително-тъканен слой образуват обонятелната лигавица. Те са разделени едни от друг с т.н. обонятелна базална мембрана. Носната повърхност на епителоподобния слой е покрита с т.н. вътрешна обонятелна мембрана. И двете мембрани следва да се разглеждат като глиални образувания (Ценев (10)).
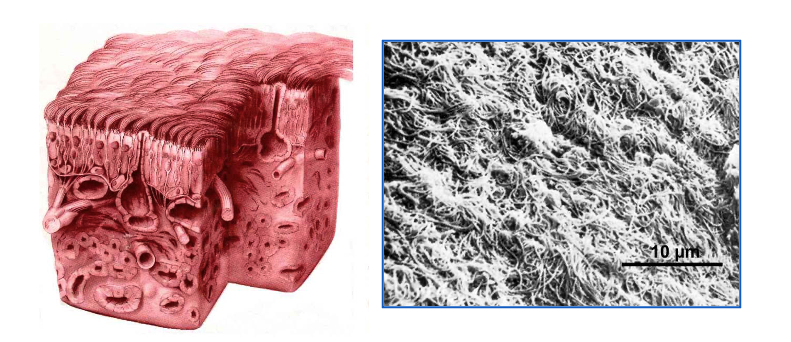
Рецепторният слой на обонятелния епител се състои от три типа клетки: сетивни, опорни и базални (фиг. 3).
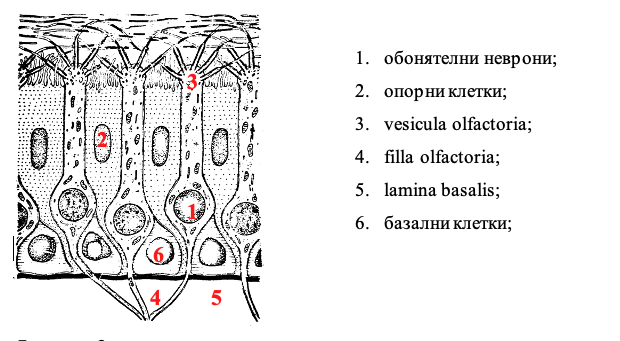
a.Обонятелните сетивни клетки имат вретеновидна форма, наподобяваща бухалка (кегла). Те са биполярни с два израстъка: централен (аксон) и периферен (дендрит). Периферните израстъци се промъкват до свободната повърхност на обонятелния епител и завършват с овално образувание – обонятелна брадавичка (vesicula olfactoria). От нея излизат 6-12 тънки, нишковидни реснички – обонятелни киноцилии (антени). Във всяка обонятелна антена се съдържат 9 чифта разположени по периферията фибрили и две нечифтни централни фибрили с диаметър 200 Å (фиг. 4).
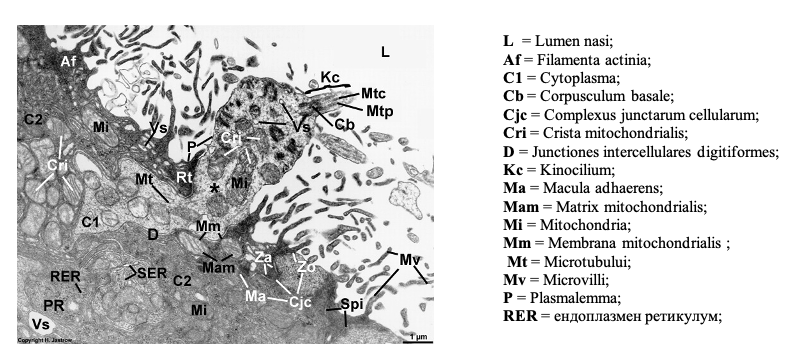
Централните фибрили започват от базалното телце на обонятелната антена и отиват до самия връх. Обонятелните антени лежат тангенциално на повърхността на обонятелния епител. Тяхната дължина е трудно да се определи, тъй като се увреждат при обработката на препаратите, но се предполага, че са по-дълги от 200 µm. Вследствие на тази значителна дължина, обонятелните киноцилии образуват сплетение от нервни влакна, което покрива обонятелната рецепторна зона и обезпечава изключително тесния контакт между молекулите на мирисните вещества и сетивните обонятелни клетки. В тялото на обонятелната клетка е разположено, голямо, с правилни контури ядро (Ценев (10)). В цитоплазмата се наблюдават множество вакуоли, рибозоми, полизоми, гранулиран ендоплазматичен ретикулум, напомнящ цистерните на секреторните клетки, но секреторни гранули не се откриват. Вторият израстък на обонятелната клетка – аксона, се отделя от тялото на клетката под ъгъл. Аксоните пробиват базалната мембрана и се групират в обонятелни връвчици – fila olfactoria – и преминават през решетъчната кост на черепа, като образуват обонятелният нерв. Обонятелните сетивни клетки притежават забележителни регенераторни способности, в които участва и азотния оксид, в ролята на медиатор (Roskams, Bredt (179)).
b.Вторият вид клетки са опорните. Богатството на ултраструктурата им с наличие на мощна система от гладки мембрани, вероятно имащи отношение към полизахаридния синтез, тонофибрили, много химични и биологични активни субстрати, показват, че те изпълняват не само опорна, но и трофична функция. Наредени са в няколко реда по 8-10 клетки, като обгръщат сетивните обонятелни клетки. Характерно за тях е, че липсват обонятелни киноцилии, а притежават микровили, които фактически са израстъци на цитоплазмата, лишени от фибрилерна структура и базално телце. Пигментни гранули в опорните клетки у човек не са наблюдавани (Amoore (13)).
c. Базалните клетки са в същност опорни, които се разполагат на базалната мембрана. Те също имат множество микровили, които обкръжават централните израстъци (аксоните) на рецепторните обонятелни клетки. Съединителната тъкан на обонятелната лигавица е типично рехава съединителна тъкан, богато снабдена с кръвоносни и лимфни съдове. Наред с нервните влакна, излизащи от сетивните обонятелни клетки, се намират вегетативни влакна и неврони на троичния нерв, които инервират обонятелната зона (Leffingwell (123)). Тук се разполагат и дисталните части на баумановите жлези.
d. Баумановите жлези отделят течността, която покрива обонятелния епител. Те се развиват от епителоподобния рецепторен слой на ембрионалната обонятелна лигавица. Баумановите жлези се отнасят към тръбестоалвеоларните жлези. Апикалната им повърхност е покрита с микровили (Rubin (182)). Баумановите жлези имат двойна секреция – екскреторна, насочена към просвета на жлезата, и инкреторна – в съдовете, идващи в контакт с дисталните им отдели. Секретът на баумановите жлези е предимно серозен (Savic (184)). Той овлажнява обонятелната лигавица и представлява универсален разтворител на мирисните вещества (Ценев (10)).
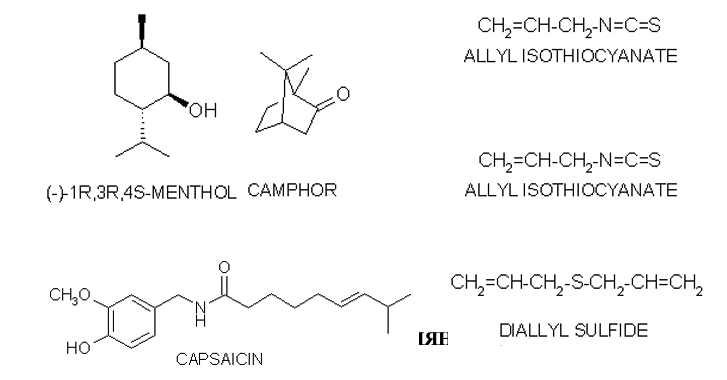
e.N. trigeminus в обонятелния епител За отбелязване е необикновено богатата инервация от тригеминални рецептори на обонятелната и респираторна част на носната кухина, която може да се разглежда като своеобразно рецепторно поле.Докато обонятелната рецепторна система е тясно локализирана при хората, петият черепномозъчен нерв (n.trigeminus – отговарящ за сензорна информация от лицето, зъбите, устата, по-голямата част на скалпа и моторни сигнали за дъвкателната мускулатура) осигурява втори набор от нервни окончания, пренасящи усета за топло, студено, болка и допир от устата, очите и носната кухина (Ценев (10)). Съществуват голям брой химически стимуланти, които предизвикват ефекти, описвани като топло, студено, смъдене, дразнене. Така напр. левоментолът (laevo-menthol или (-)-menthol), в умерено количество предизвиква усещане за хлад по хода на тригеминалните окончания, а ако се приложат по-големи количества се появява усещане за парене (Oppenheim (160)). Този тип на описание на усещанията, често пъти е ограничен в рамките на носа, устата и очите, но също така възниква по зони на кожата, чиято сетивност не се обслужва от V ЧМН (напр. гениталиите). Следователно стимулантите биха могли да активират най-разнообразни нервни окончания. По подобен механизъм, камфорът, който е доста по-ароматен от ментола, също предизвиква усет за хлад по хода на тригеминалните окончания. Ohloff (156) постулира, че “приблизително 70% от всички мирисни вещества стимулират троичния нерв, макар че като цяло неговите рецептори са няколко пъти по-слабо чувствителни от обонятелните рецептори”. Други вещества, които често се използват като стимуланти на троичния нерв са изотиоцианат (isothiocyanate – горчица), капсаицин (capsaicin – лютив червен пипер, люти чушки, чили сос) и диалил сулфид (diallyl sulfide – лук) (Neff (151), Araneda, Firestein (17), Araneda (18)). (фиг.5).
Централен отдел на обонянието
a. Bulbus olfactorius. Обонятелната луковица е разположена по долната страна и в началото на sulcus olfactorius, намиращ се по орбиталната повърхност на фронталния лоб. Възприема входящите сигнали от обонятелните сензорни неврони, чийто невронални влакна се обединяват в около 20 снопчета (fila olfactoria), преминаващи през отворчетата на lamina cribrosa. Обонятелната лукувица и обонятелния път, които директно пренасят входящите сигнали към обонятелната кора започват развитието си под формата на кух дивертикул по пода на примитивната мозъчна хемисфера. Базалната част се издължава за да формира tractus olfactorius и при човешки фетус – кухината на обонятелната луковица („обонятелен вентрикул”). След това, стените на издължения tractus olfactorius се сливат и той постепенно облитерира. (Zucco (236)). Понякога мястото на бившата кухина се маркира от вестигиални групи от модифицирани епиндимни клетки. По този начин обонятелната луковица придобива радиална организация с определен брой надлежащи слоеве. Този ламинарен строеж е добре дефиниран при много бозайници, включително и в човешкия фетус, но става по-слабо забележим с узряването на мозъка (Zattore (227)). Обонятелната луковица притежава ясна ламинарна структура (Pinching(167)) – ще прегледаме слоевете от вън навътре, както следва:
b.Слой на обонятелния нерв. Състои се от немиелинизираните аксони на обонятелните неврони. Поради непрестанното обновяване на рецепторните клетки, аксоните в този слой се намират в различен стадий на растеж, зрялост и деградация (Pinching(167));
c.Гломеруларен слой. Изграден е от тънък слой от гломерули, които са пронизани от постъпващите влакна на обонятелните неврони, които се отделят строго в гломерулите и синаптират върху терминалните дендритни туфи (четки) на вторичните обонятелни неврони. Вторичните обонятелни неврони биват митрални, четковидни и перигломеруларни (Zattore (229));
d.Външен плексиформен слой. Състои се от главните и вторичните дендрити на митралните и четковидните клетки. Този слой се дели на още два слоя: повърхностен – съдържащ предимно телата на четковидните клетки и дълбок слой – съдържащ предимно телата на секундерните дендрити;
e.Слой на митралните клетки. В него, под формата на тънък лой са разположени телата на големите митрални клетки, всяка от които изпраща единичен главен дендрит към гломерулите, множество вторични дендрити към външния плексиформен слой и единичен аксон към дълбоките слоеве на лукувицата.
f.Вътрешен плексиформен слой. Съставен е от аксони, възвратни и дълбоки колатерали на митралните и четковидните клетки, а също така и телата на някои зърнести клетки (Zattore (228));
g. Слой на зърнестите клетки. Тук е разположено мнозинството от зърнестите клетки, заедно с техните повърхностни и дълбоки израстъци. Представляват огромно количество, напр. 3х106 при плъх и са подредени на малки плътни струпвания. Този слой се прекосява от голям брой центрипетални и центрифугални нервни влакна;
h. Перивентрикуларен (субепиндимен) слой.За да сме изчерпателни трябва да споменем и този слой. Това е най-дълбоката структура на обонятелната луковица, която е разположена около облитериралия булбарен вентрикул.
i.Невронални елементи на обонятелната луковица. Подобно на другите области в мозъка и те се разделят на три категории: входящи, изходящи и вътрешни. Както вече споменахме по-горе, входящите сигнали в обонятелната луковица постъпват най-вече от обонятелните сензорни неврони, но имаме също така и входящи сигнали постъпващи от най-разнообразни места в мозъка. Всички сензорни аксони са немиелинизирани и групирани в снопчета, които се разделят и преплитат след като проникнат във вътрешността на bulbus olfactorius, където завършват върху гломерулите (Ljungdahl (129)).
j.Обновяване на сензорните обонятелни неврони. Една важна и изключителна черта на обонятелните сензорни неврони е тяхното непрестанно заместване от стволови клетки, разположени в обонятелния епител. Това означава, че за да се посрещне това непрестанно ремоделиране, в гломерулите би следвало да се поддържа голяма специфичност на синаптичните свързвания (Kosaka (109)). Тази степен на пластичност не се открива никъде другаде в централните отдели на ЦНС на бозайниците и нейната молекулярна основа още не е изяснена. Обонятелните сензорни неврони съдържат специален пептид – обонятелен маркерен протеин, а също и високи концентрации на дипептидът карнозин. Те нямат невротрансмитерна функция в гломерулите. Обонятелната нервна глия съдържа също така и глиален фибрилерен кисел белтък, подобен на този открит в астроцитите от ЦНС (Tanabe (203)). В слоя на обонятелния нерв на израстналия индивид е открит белтъка ламинин. Счита се че може би той е свързан с непрестанното ремоделиране на обонятелни аксони, постъпващи в луковицата от обонятелния епител.
k. Входящи (центрифугални) влакна. Цетрифугалните влакна, постъпващи в обонятелната луковица, възникват от разнообразни места в мозъка и завършват в строго определени слоеве (Macrides и Davis 1985 (132); Shepherd и Greer 1990 (196)). Невроните в nucleus olfactorius anterior изпращат своите аксони в bulbus olfactorius, където техните различни слоеве завършват в различни популации на зърнести клетки. Колатерални на аксони от пирамидни неврони, разположени в обонятелната кора (вж. по-долу) също достигат обонятелната луковица и завършват предимно върху слоя на зърнестите клетки. В диагоналната лента на Brocca (stria diagonalis) е разположен nucleus limbicus horizontalis, изграден от холинергични неврони, чийто аксони завършват предимно в перивентрикуларните части на гранулозния слой. Други важни, химически дефинирани аферентации пристигат в луковицата от locus coeruleus pontis и raphe nucleus mesencephalici. Посредством тези центрифугални аферентации мозъка оказва значително ниво на контрол в луковицата.
l.Изходящи (центрипетални) влакна. Главните неврони в bulbus olfactorius са митралните и четковидните клетки. Техните аксони формират изходящите влакна, които притежават центрипетален ход и съставляват tractus olfactorius.
m.Митрални клетки. Най-общо казано, всяка митрална клетка дава начало на единичен първостепенен дендрит, който преминава през външния плексиформен слой за да завърши като четчица (туфа) от разклонения в гломерула. Всяка митрална клетка, също така дава начало на латерално насочени вторични дендрити, които се разклоняват в много по-малка степен от първостепенните дендрити и завършват в външния плексиформен слой.
n.Четковидни клетки. Четковидните и митралните клетки имат подобен морфологичен строеж, но четковидните са разположени по-повърхностно във външния плексиформен слой. Идентифицирани са три главни групи четковидни клетки (Shepherd и Greer 1990 (196)):
1.Средни четковидни клетки. Представляват основната популация, като притежават няколко тънки базални дендрити и първичен дендрит, който завършва в затвореното пространство на четковидни дендрити в гломерула. Техните аксони влизат в състава на tractus olfactorius, но дават и колатерали за вътрешния плексиформен слой. Важно е да отбележим, че техните проекции завършват на места в обонятелната кора, различни от тези на митралните клетки;
2.Външни четковидни клетки. Притежават дендрити с отличаващ се модел на разклоняване и дават колатерали за вътрешния плексиформен слой и близкия слой на зърнестите клетки. Представляват интерневрони и биват класифицирани като вътрешни неврони.
3.Вътрешни четковидни клетки. Наподобяват вида и позицията на най-външните митрални клетки.
Подобно на митралните клетки, четковидните клетки също използват глутамат/аспартат като невротрансмитер, но за някои се твърди , че притежават допаминергични дендрити (Halász и сътр. 1981 (89), Halász, 1995 (88)).
Основният невротрансмитер на зърнестите клетки е гама аминомаслена киселина. Като допълнение към класическите невротрансмитери, в обонятелната луковица бяха локализирани множество невропептиди, като повечето от тях се секретират от вътрешни интерневрони, често в съчетание с класическите невротрансмитери гама аминомаслена киселина, допамин или глутамат/аспартат. В някои зърнести и перигломеруларни клетки е би открит енкефалин, а в четковидните клетки и субстанция Р (Kream (110)). И накрая, в центрифугалните аферентации на обонятелната луковица е бил открит и лутеин освобождаващ хормон (Everitt и сътр. (67, 68)).