От Д-р Николай Цаков, Клиника по УНГБ при МБАЛ „Царица Иоанна”.
ПАТОГЕНЕЗА НА УВРЕЖДАНЕТО НА СЛУХА
(превод от английски)
Увреждането на слуха може да възникне от звукова свръхстимулация, от повишена уязвимост на ухото или от комбинацията от тези два фактора.
Хипотеза се опитва да обясни последствията от звукова свръхекспозиция (1969).
Най-напред лежи разбирането че механична травма вероятно води до увреждане на архитектурата на структурите във вътрешното ухо.
На второ място се приема, че патологичните въздействия на прекомерно силният звук отключват метаболитен отговор спрямо стреса.
В тази хипотеза съществуват две основни отправни точки на възможностите за терапевтично повлияване: това е физическото редуциране на попаднащата върху слуховия анализатор звукова енергия и опит за фармакологично повлияване на клетъчния отговор спрямо свръх мощните стимули.
Увреждане на слуха би могло да възникне и от безвреден интензитет на околните звуци – тогава говорим за повишена уязвимост на слуховия анализатор.
Всеки опит изцяло да се обясни шумовото увреждане на слуховия анализатор на системно, клетъчно и молекулярни нива открива обилие от нови неразрешени проблеми. Това до голяма степен се дължи на факта, че са проведени множество експериментални уврeждания на слуховия анализатор при различни условия. В интерес на истината, обаче репродуцируемост (повторяемост) на уврежданията дават едва няколко типа на алтерации (53; 70-73).
1. Увредени тъкани и клетки във вътрешното ухо
Един от физичните параметри, с които би могла да бъде описана една акустична травма е експозицията, която се определя от интензитетът и продължителността на звука. След това, в зависимост от изминалото време от травмата, биха могли да бъдат наблюдаван различни стадии на развиващи се патологични процеси. Отбелязва се също така и дали уврежданията са обратими или необратими. Всяка една количествена или качествена промяна в слуха се отнася до изменения в конкретни тъканни структури или клетъчни елементи. Засегнатите тъканни структури в охлюва са:
- Орган на Корти и
- Косъмчеви рецепторни клетки
- Поддържащи клетки
Засягат се и тъканите, разположено медиално от органа на Корти
- Limbus laminae spiralis
И най-латерално
- Ligamentum spirale и
- Stria vascularis на ductus cochlearis
Допълнително увредени могат да бъдат и
- Аферентните неврони на слуховия нерв (телата им са разположени в спиралния ганглий).
Обикновено в отделни индивиди не се развиват всички гореспоменати увреждания, но външните косъмчеви клетки почти винаги са засегнати. Ето защо отделно ще разгледаме аудиологичните последствия от тяхната загуба.
1.1. Увреждане на въшните косъмчеви клетки
Едно специфично свойство на външните косъмчеви клетки – мотилитетът, формира основата на локалния усилвателен механизъм на кохлеята. Изолиран беше мотилитетният белтък prestin (78). Предизвиканото от болестен процес изолирано увреждане на външните косъмчеви клетки води до значителен спад в пропагирането на пътуващата вълна. В резултат на това, слуховите прагове се повишават, появява се рекруитман феномен (79). Пътуващата вълна предизвикана от тих звук се амплифицира твърде кратко време, и за да се чуе звука той трябва да се представи с по-високи нива на интензитет от около 50-70dB HL, при което сигналът се възприема директно от вътрешните косъмчеви клетки. Това естествено се установява най-добре с тонална прагова аудиометрия.
Допълнително страда и внезапният пик на пътуващата вълна, след който тя нормално изчезва. Този пик е отговорен за честотната селекция (дискриминация) и неговата липса води до намалена говорна разбираемост (81). Тази патология се визуализира като дискриминационна загуба при говорната аудиометрия. Нещо повече, появява се рекруитман феномен, а акустично евокираните отоакустични емисии намаляват или изчезват. Рязко се влошава и бинауралния слух – пространственото възприемане на звуци и различаването им в шумна обстановка се ограничават в голяма степен.
1.2. Рекруитман феномен
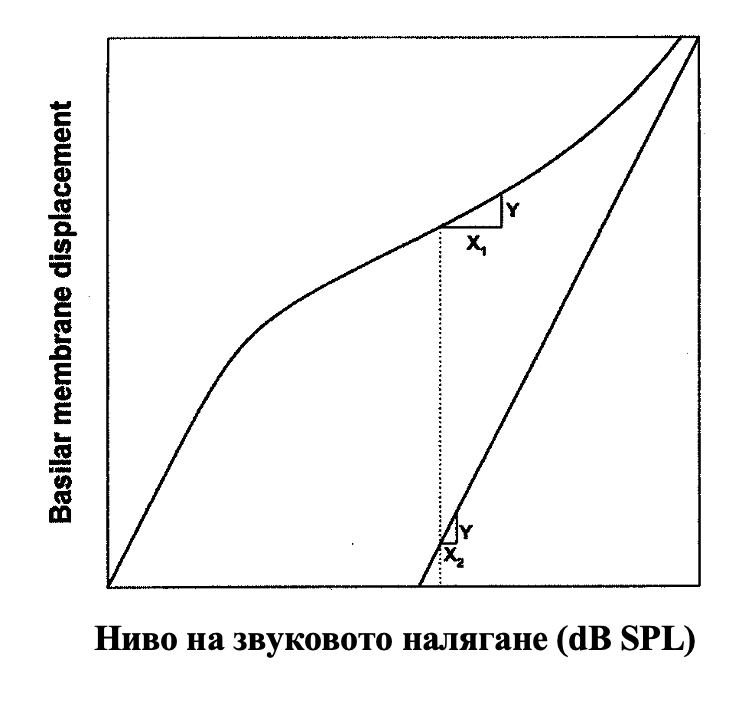
Увреждането на външните косъмчеви клетки засяга нелинейното усилване на пътуващата вълна, което усилва локалното звуково налягане (79). Поради тази причина при засегнатите индивиди, един силен тон, който се последва от втори по-мек (надпрагова аудимотрия по Békéshy), води до относително по-силно (линейно) увеличение на пътуващата вълна, отколкото при нормални физиологични условия. На фиг.5 увеличението на амплитудата на пътуващата вълна върху увеличението на звуковото налягане, при увреденото ухо следват линейна зависимост, докато при здраво ухо зависимостта е нелинейна, сигмоидална (процесът в здравто ухо се дължи на усилването от външните косъмчеви клетки). Поради тази причина който и патологично повишен праг да бъде надвишен разликата в нивата на звуковото налягане се възприемат по-рано от засегнатите индивиди в сравнение със здравите хора. При по-високите нива на интензитет възприятията на хората с увреден и нормален слух се изравняват – това явление нарича изравняване на силата на звука. Ето защо на рекруитман феномена се гледа като на белег за кохлеарно увреждане и в частност на външните косъмчеви клетки.
| Ниво на звуковото налягане (dB SPL) |
Фиг.5: Хипотезата за рекруитмента може да се концептуализира като загуба на активното кохлеарно усилване. S – образната огъната линия: С активното кохлеарно усилване, увеличението в аплитудата (y) на базалната мембрана на вътрешното ухо трябва да възприема промени в гръмкостта изисква сравнително голямо увеличение на звуковот налягане (x1) тъй като кривата е нелинейна (341). Правата линия: Без амплифициране (пасивно вътрешно ухо) кривата е линейна. За едно и също увеличение на амплитудата (y) се изисква по-малко увеличение на звуковото налягане (x2) (342). Така се дефинира рекруитмана. Загубата в динамичното поле се придружава от загуба на честотна селективност, а от там и загуба на речева дискриминация (79).)
2. Механично увреждане на кохлеарната архитектура
Шумът който застрашава слуха рядко предизвиква изместване във вътрешното ухо, което да надвишава 800nm (при 150dB SPL) (83). За сравнение външните слухови клетки достигат дължина до 80 000nm (80μm) и диаметър от 5 000nm (5μm).
2.1. Грубо механично увреждане
Поради гореспоменатите факти грубите увреждания са редки. Единствено особено силните интензитети, каквито възникват при някои взривове и в експериментални условия с животни (210dB), водят до видими хистологични груби механични разкъсвания във вътрешното ухо (84). Деструктивните механични увреждания са под формата на структурни промени в органа на Корти. Наблюдават се руптури на клетъчни апикални връзки, на stratum reticulare или увреждане на опорни клетки (особено на стълбестите клетки) (12, 16). Не трябва да забравяме факта, че високите калиеви концентрации, които се отделят при акустична травма от ендолимфатичните пространства, могат да доведат до клетъчна гибел. Развиват се необратими некротични промени (85). Клетъчната смърт поради некроза се обеснява по-долу.
2.2. Микромеханични увреждания
По правило, поради пространствените аспекти, споменати по-горе, при повечето акустични травми се очакват предимно микромеханични увреждания или дори липса на механично увреждане в архитектурата на вътрешното ухо. Както вече споменахме по-горе, метаболитният стрес, който се появява в резултат на функционална свръхстимулация, вероятно играе най-значителната роля при шумово предизвиканите увреждания.
Микромеханично се наблюдава декуплиране на стереоцилите на външните косъмчеви клетки (OHC) от покриващата ги мембрана тектория (86). Резултатът от това декуплиране е загубата на слуха, който би могъл да се възстанови посредством въстановяване на цилиарния контакт с membranа tectoria (т.е. рекуплиране на цилите) – феномен, който би могъл да доведе до временна смяна на праговете.
Ранна микромеханична реакция представлява загубата на ригидност и съответно омекването на стереоцилиите. В норма стереоцилиите са твърди и изправени, но при увредените косъмчеви клетки те са размекнати или огънати, но не и счупени. Както ще видим по-долу, това всъщност е отговора спрямо метаболитния стрес. Дължи се на деградиране на цитоскелетни белтъци (87). При такива условия механо-електричната трансдукция е невъзможна.
При продължителна експозиция на високоинтензитетен увреждащ стимул, механичното увреждане би могло да доведе до дефинитивна загуба на стереоцилии. Тук също механо-електричната трансдукция е невъзможна. При вътрешните косъмчеви клетки (IHC) се наблюдава загуба на най-дългата стереоцилия, което води до намаление на потенциала на покой през мембраната на стереоцилията (88). Това отново води до прекъсване на процесите на трансдукция.
2.3 Метаболитен стрес
Всички клетки, дори и тези, изпълняващи основни функции в кохлеята реагират сравнително стереотипно на разнообразните увреждащи фактори (механичен стрес, хипоксия, отрови, химични субстанции, патогени). Задействат се едни и същи или подобни клетъчни каскади на клетъчния метаболитен отговор (т.нар. общ финален път).
Съгласно сегашното ниво на познания се счита, че основна роля в патологичните процеси, протичащи в нервните влакна и периферния слухов анализатор, играят:
- масивното повишение на извънклетъчен глутамат,
- калциевия инфлукс в клетките и
- формирането на свободни оксидативни радикали. (89-92).
Става дума не толкова до активиране на паралелни каскади, колкото до отключване на мрежовидни разклонения от протичащи биохимични процеси. В отговор на звукова свръхекспозиция клетките изпадат в т.нар. метаболитен стрес.
В резултат на този метаболитен стрес, в засегната клетка могат да се развият явления на цитоскелетна деградация или дори на клетъчна смърт (декомпенсиран метаболитен стрес).
Възможно е и обратно развитие – активирането на контрарегулаторни протективни механизми и/или активирането на репаративни (възстановителни) механизми, които да се справят с надвисналата опасност (компенсиран метаболитен стрес).
Важна форма на метаболитния стрес е оксидативни стрес (вж. по-долу). Свързан е с производството и натрупването на свободни радикали, предимно в косъмчевите клетки. Екситоксичността е свързана с нарастване на екстрацелуларните концентрации на глутамат и увеличеното навлизане на калциеви йони в клетките. При кохлеята тези процеси засягат най-вече аферентните неврони на слуховия нерв. Молекулярната цитоскелетна деградация е типична за стереоцилиите.
2.3.1 Деградиране на цитоскелетните протеини
Феноменът на микромеханичното отслабване на цилиите, при което те буквално омекват е изключително специфична и добре документирана метаболитна реакция на косъмчевите клетки (93). В норма твърди и изправени, цилиите са огънати и дори слети когато са увредени (87). В основата на това биофизично и биохимично явление стоят молекулярни промени в актиновите филаменти на цилиите. Актиновите филаменти изграждат цитоскелета, отговорен за ригидността на цилиите (94). При някои патологични състояния в цилиите, възниква деградация на молекулите, които напречно свързват актиновите филаменти (87, 95). Акустичната травма, може също така да предизвика деградиране на молекулите на F-актина. Този процес би могъл да се предотврати с инхибитор на капсаза-3 (96).
В момента интензивно се изследва динамиката на непрестанното ремоделиране на актиновите филаментарни структури в стереоцилиите. Тези процеси изглежда играят роля в самопоправянето на омекналите стереоцилии, поради което са обект на интензивни изследвания (97).
2.3.2 Оксидативен стрес
Формирането на свободни кислородни радикали обикновено е свързано с висока метаболитна активност. Важните реактивни кислородни радикали включват супероксидния анион (O˙2-), хидроксилния радикал (OH·) и водородния прекис (Н2О2). Супероксидният анион би могъл да реагира с азотния окис (NO) при което да формира пероксинитрит (ONOO–). При нормални условия (потенциално токсичните) свободни радикали, генерирани в клетъчните митохондрии се обезвреждат от вътреклетъчни ендогенни антиоксидативни системи (90). Ако оксидативните процеси вземат превес, клетката влиза в режим на апоптоза (програмирана клетъчна смърт).
2.3.3 Каскади на оксидативния стрес в кохлеята
Опитите с животни показаха, че формирането на свободни кислородни и азотни радикали в кохлеята представлява основен механизъм на уврежданията, настъпващи след звукова травма. Тук трябва да отбележим, че голям брой патологични процеси (звукова травма, хипоксия/исхемия, отоксични аминогликозиди, липса на растежни фактори и др.) в крайна сметка водят до оксидативен стрес (25, 92, 98, 99).
2.3.4 Декомпенсиран оксидативен стрес
Ако клетъчните протективни механизми не се справят със свободните радикали, последните разрушават клетъчната и ядрената мембрани посредством липидна пероксидация, фрагментират молекулата на ДНК, активират клетъчните протеази. В крайна сметка извънклетъчния калций нахлува в клетката (настъпва т.нар. интрацелуларен калциев инфлукс) което води до нейната гибел.
Азотен окис и шум
Счита се, тъканните увреждания в кохлеята се предизвикват, не само от формирането на свободни кислородни радикали, но и от азотния окис (NO). В кохлеята беше доказано наличието на ензимите, синтезиращи азотния окис – NO синтетази (113; 114). Shi и сътр. в in vitro експерименти с морски свинчета, доказа повишение на NO в перилимфата, вътрешните и външните косъмчеви клетки, след понесена акустична травма (2002, (115)). Приема се, че развитието на цитотоксичен ефект се дължи на реакцията на азотният оксид със супероксидния анион, при което се продуцира пероксинитрит (ONOO–). Пероксинитритът притежава силни окислителни свойства, които модифицират аминокиселините и нуклеотидите. По този начин се оказва влияние върху вътреклетъчните сигнални каскади (116). Експерименталното прилагане на молекули, неутрализиращи действието на пероксинитрита, като напр. селеноорганичното съединение ебселен, при животни, намалява кохлеарното увреждане и дефинитивната загуба на слуха (103).
Екситотоксичност
Екситотоксичността представлява механизъм, по който акустичната травма уврежда аферентните влакна на слуховия нерв. Основите на екситотоксичността и невроналното предаване през аферентно-ефернтния синаптичен комплекс на вътрешните косъмчеви клетки, бяха изчерпателно описани от Pujol и Puel и сътр., а също така и от Ehrenberger и Felix и сътр. (117; 118).
Основният невротрансмитер между вътрешните косъмчеви клетки и аферентните влакна на слуховия нерв е глутаматът (119; 120). По време на нормален слухов процес, глутаматът се свързва за бързите AMPA рецептори на слуховите нервни влакна, докато бавните NMDA рецептори, които също са представени там, нямат физиологично значение. Това се доказа от най-съвременните физио-фармакологични изследвания, сравняващи действието на един NMDA рецепторен антагонист (D-2-amino-5-phosphonopentanoate) с действието на друг селективен антагонист на AMPA рецепторите (GYKI53784). При тези експерименти се установи, че бързата възбудна трансмисия между вътрешната косъмчева клетка и първичния слухов неврон, наистина се опосредствява предимно чрез AMPA рецепторите, докато NMDA рецепторите играят по-незначителна роля (121; 122).
При ексцесивна стимулация, обаче се отделя голямо количество глутамат, който от своя страна активира NMDA рецепторите. Това води до фатални последици за нервната клетка (118).
Синапсите между вътрешните косъмчеви клетки и аферентните нервни влакна
Огромното мнозинство от аферентните нервни влакна (90-95%) инервират вътрешните косъмчеви клетки. Това се осъществява директно, без разклонения от миелинизирани влакна тип І (123; 124). Основният невротрансмитер в синапса между вътрешната косъмчева клетка и аферентното влакно е глутаматът (120; 125; 126). Според своите агонисти, рецепторите за глутамата се делят на N-метил-D-аспартатови (NMDA) и на α-амино-3-хидрокси-5-метил-4-изоксазолпропионатови (AMPA). Описани са също така и каинатови рецептори (kainate). Доказателствата за съществуването на тези рецептори идват от проведените имунохистохимични изследвания, in situ хибридизации и проучвания върху генната експресия. Всички тези изследвания показват, че първичните слухови неврони експресират рецепторни субединици на: NMDA (NR1 и NR2A-D); AMPA (GluR2-4) и на kainate (GluR5-7). Установени са и високоафинитетните каинат свързващи протеини KA1 и KA2 (127-131).
Механизми на кохлеарната екситотоксичност
Ако в синаптичната цепка се освободи прекомерно голямо количество от невротрансмитера глутамат и/или той не се отстрани от там, ще последват невротоксични ефекти. Този феномен е наречен екситотоксичност (132). Фактът, че прилагането на веществото кинуренат (kynurenate – антагонист на глутамата с широк спектър на действие), несъмнено оказва протективен ефект върху морфологичните увреждания и слуховата функция, говори за специалната роля на синаптичното освобождаване на глутамат от вътрешните косъмчеви клетки, при ексцесивна звукова травма (133).
NMDA рецепторите съдържат йонни канали (т.е. това са йонотрофни рецептори). Те са от изключително значение за разбирането на екситотоксичността. Йонните канали пропускат към вътрешността на клетката, не само моновалетни катиони, но също така и калциеви йони. Каналите на NMDA рецепторите се блокират от извънклетъчен магнезий (Mg++). Това предоставя интересна възможност за терапевтично въздействие. Това блокиране е волт-зависимо, поради което пропускливостта за калций на свързаните с NMDA рецепторите йонни канали, е налице само ако са изпълнени две условия: 1) глутаматът трябва да е във високи концентрации и 2) нервната клетка трябва да бъде деполяризирана (134). И двете условия са изпълнени, при излагане на прекомерен шум. Приема се че при звуково предизвикан излишък от глутамат (вътрешните косъмчеви клетки отделят диспропорционално количество от невротрансмитера) изчезва блокиращото действие на Mg++ върху NMDA рецепторите. По този начин нормално неактивните NMDA рецептори се активират, което води до нахлуване на калциеви йони в аферентните слухови влакна. Това предизвиква дълготрайно потенциране на трансмисията, което води до калциева интоксикация на влакната.
Развиващата се екситотоксичност се характеризира от двустепенен процес. Първоначално, в резултат от вътреклетъчното нахлуване на йони (предимно калциеви) и на свързаната с тях вода, се появява оток на синаптичните структури. Това предизвиква функционална загуба на контактни дендрити. На второ място, калциевият инфлукс отключва каскади, освобождаващи свободни радикали и активиращи различни протеази и ендонуклеази. Тези процеси, в края на краищата, водят до метаболитна декомпенсация с последваща смърт от апоптоза на първичния слухов неврон (135).
2.3.5 Клетъчна смърт
В много случаи клетъчната смърт е резултат или на механична травма или по-често, на метаболитна декомпенсация – отговор към стрес, какъвто е случая с клетъчната смърт в кохлеята или аферентациите на слуховия нерв. В кохлеята най-често се оказват засегнати външните косъмчеви клетки. Следствие от клетъчната смърт е хистологичния белег, който се развива на мястото на функционалните клетки във вътрешното ухо. Различават се две форми на клетъчна смърт: некроза и апоптоза.
Некроза: Експериментите с животни показаха че некрозата играе важна роля, най-вече при увреждането на кохлеята от високо интензитетен шум (136, 137). Първите загинали клетки са жертва на директното механично действие на звука. Налице са или директно механично разкъсване на клетката или калиева интоксикация след увреждане на ендолимфатичното пространство. Развиващата се некроза представлява пасивна, безпорядъчна клетъчна смърт с освобождаване на вътреклетъчното съдържимо, което допълнително покачва токсичните вещества в околността. Уврежданията в акустично увредената кохлея обхващат широки зони от нея. При апоптичните косъмчеви клетки (вж. по-долу) уврежданията са ограничени до тонотопичната зона на увреждащата честота на звука, обикновено вбазокохлеарния регион.
Апоптоза: Тази форма на клетъчна смърт се различава от споменатата по-горе некроза. При експерименти с животни се доказа, че апоптозата е главния виновник за възникването на трайна смяната на праговете на слуха (136, 137). Разбира се клетъчната смърт от апоптоза и в частност на сензорния епител води до постоянна, необратима загуба на слуха.
За разлика от пасивната безпорядъчна некроза, при апоптичните клетки се задейства високоорганизирана, генетично контролирана програма. Нормално апоптозата се проявява в регенеративните клетки, за да се регулира клетъчния брой. Ако апоптозата възникне обаче, в зряла клетка на вътрешното ухо, възниква нежелан патологичен процес, следствие на шумово индуциран метаболитен стрес.
При наблюдение на апоптоза, възникнала след акустична травма, клетките реагират на вътреклетъчни сигнали от шумово предизвикан оксидативен стрес. В началната фаза, клетъчното ядро, цитоплазмата и митохондриите се свиват, без това да се отрази първоначално на клетъчния интегритет. Не се отделят протеолитични ензими и по правилно не възниква възпалителна реакция. На този етап хроматина (ДНК и свързаните с нея структурни белтъци) се уплътнява и разрушава. Клетъчния бем намалява, по мембраната се появяват мехурчета и клетката губи контакт с околните клетки. Най-накрая от клетката остават няколко обвити с мембрана апоптични тела, които се елиминират чрез фагоцитоза, бе каквато и да е местна възпалителна реакция (за по-детайлен преглед вж. Majno и Joris, 1995 (138) и Reed, 2000 (139).
Апоптозата, в зависимост от клетъчния тип, може да бъде иницирана от външни или вътрешни сигнали (съотв. външен и вътрешен път). Тези два пътя завършват с един общ път. При него се инициира сигнална каскада, чиито център се заема от ензими-протеази. Тези ензими (най-вече капсази) необратимо стартират програмираната клетъчна смърт (140). Каспазите принадлежат към семейството на аспартат-специфичните цистеинови протеази. Според структурата си, капсазите биват инициатори (напр. каспаза-1, -8, -9 и -10) или ефектори (напр. каспаза-3, -6, -7) на апоптозата. В момента, обект на интензивни проучвания са и други пътища на активиране на програмираната клетъчна смърт при акустична травма.
3. Ендогенни протективни механизми на слуховия анализатор
Ухото притежава механизми за възстановяване на слуха и защита от шум. Аудиологичното възстановяване обаче не означава задължително и пълна биологична реституция. Наблюденията и експериментите сочат, че ухото „помни” акустичната травма в зависимост от времето на експозиция, времето за възстановяване и честотата и интензитета на увреждащия звук.
3.1 Системни защитни механизми на слухови анализатор
3.1.1 Мускули на средното ухо
Рефлексите на средното ухо водят до намаляване на интензитена на постъпващите акустични сигнали, чрез промяна на импеданса на средното ухо (162). За съжаление рефлексите на средното ухо притежават сравнително дълго латентно време, поради което не са в състояние да предпазят ухото от импулсен шум.
3.1.2 Еферентации на слуховия нерв
Еферентациите в слуховия нерв контролират вътрешното ухо. Счита се също така, че изпълнявят и предпазваща функция срещу силни звуци. Различаваме латерална оливо-кохлеарна система, контролираща аферентациите в слуховия нерв, които започват от вътрешните косъмчеви клетки и медиална оливо-кохлеарна система – инхибитор на подвижността на външните слухови клетки.
Латерална оливо-кохлеарна система: Еферентните влакна към вътрешните косъмчеви клетки, започват от nucleus olivaris superior и не завършват директно върху самите сензорни клетки, а по дендритите на І тип аферентни влакна, разположени под вътрешните косъмчеви клетки (164; 165). В областта на синаптичната цепка са установени разнообразни невротрансмитери или невромодулатори: ацетилхолин, γ-аминомаслена киселина (GABA), допамин, енкефалини, динорфини, а също и „калцитонин индуциран пептид” (120). Латералните еферентации осигуряват модулиране на входящите сигнали, постъпващи от вътрешните косъмчеви клетки към централната нервна система.
От всички инхибиторни невротрансмитери на латералната оливокохлеарна система, едва наскоро бе установена функцията на допамина. Вътрекохлеарното приложение на допамин редуцира сумарния акционен потенциал на слуховия нерв (CAP) и предизвиква намаление на спонтанната невронална активност, но забележете – без да бъде засегната честотната селективност на слуховия нерв. Приложението на допаминови антагонисти действа по обратен начин – покачва сумарния акционен потенциал на слуховия нерв. Тези находки сочат, че допамина изпълнява тонично-инхибиторни ефект върху активността на първичния слухов неврон, а също и че загубата на тази инхибиция води до ранни белези на екситотоксичност (оток на дендритите).
Медиална оливо-кохлеарна система: Медиалният оливо-кохлеарен сноп включва влакна, които завършват върху външните косъмчеви клетки. Еферентните сигнали от нервните влакна на тази система преминават върху външните косъмчеви клетки посредством ацетилхолин и γ-аминомаслена киселина (GABA) (168; 269). Ацетилхолиновите рецептори по външните косъмчеви клетки притежават свойства, характерни за n-холинорецепторите (никотинов тип) (168; 170). Ацетилхолинът предизвиква калциев инфлукс във външните косъмчеви клетки, който се последва от калиев ефлукс. Това хиперполяризира външната косъмчева клетка и инхибира бързите еферентни инхибиторни ефекти (172; 173). При физиологични условия медиалният ливо-кохлеарен сноп се активира от контралатерални звукови сигнали (174; 175), като по този начин се подтиска бързата моторна активност на външните косъмчеви клетки. Cody и Johnstone (1982), а също и Maffi и Aitkin (1987) показаха, че контралатералното стимулиране на слуха може да редуцира ипсилатерална звукова травма. Този протективен механизъм изчезва в присъствието на стрихнин (инхибитор на оливокохлеарни сноп).
3.2 Клетъчни защитни мехамизми на слуховия анализатор
3.2.1 Ендогенни антиоксидативни системи
Както вече дискутирахме изключително силната звукова стимулация води до формиране на гибелни свободни радикали в кохлеята (100; 101), но също така могат да активират и ендогенни антиоксидативни механизми. Така например след акустична травма, в кохлеята е установена повишена концентрация на глутатион (102).
Ето защо клетките на кохлета са снабдени със сложен набор от антиоксидативни предпазващи механизми. Витамини (аскорбинова киселина, α-токоферол), глутатион и ензими. От ензимите трябва да различаваме тези включени в глутатионовия метаболизъм (глутатион –S-трансфераза, глутамил-цистеин-синтетаза, глутатион редуктаза, глутатион-пероксидаза) и тези включени в реакции със супероксидни аниони (супероксиддисмутаза, каталаза). Ензимите от глутатионовият метаболизъм показват най-висока активност в кохлеарните тъкани, в сравнение с активностите в другите невросензорни тъкани. Посочените ендогенни кохлеарни антиоксидативни защитни системи могат да инактивират активни кислородни радикали и да оказват протективно действие срещу тези нокси (25).
3.2.2 Невротрофни фактори
Сред контрарегулаторните процеси, активирани от звуковата травма е и идуцирането на невротропни фактори (невротрофини). Пример за невротрофин е секретирания от глиални клетъчни линии растежен фактор GDNF (GDNF – Glial cell-line Derived Neurotrophic Factor ) (184). Невротрофините представляват малки пептиди, които след свързването си със специфични рецептори, активират вътреклетъчни сигнални каскади, нужни за клетъчното развитие, клетъчната диференциация, отселяването на клетката или ако говорим за аксонални клетки и за регенериране (вж статиите на Bibel и Barde 2000 (185)). Keithley и сътр. показаха, че локалното приложение на GDNF действа протективно за кохлеята, спрямо високоинтензитетните шумови въздействия (186). Поради тази причина и поради факта, че нивата на GDNF се увеличават във звуково травмираното вътрешното ухо, GDNF вече се приема като един ендогенен протективен фактор.
Други пептиди-невротрофини, за които се предполага че притежават протективни свойства са BDNF (Brain Derived Neurotrophic Factor – мозъчен невротрофен фактор), по повърхността на косъмчевите клетки, бяха открити рецептори за епидермален растежен фактор – EGF (Epidermal Growth Factor) и фибробластен растежен фактор – FGF (Fibroblast Growth Factor). В кохлеята са открити рецептори и за съдов ендотелен растежен фактор – VEGF (Vascular Endothelial Growth Factor). Познанието натрупвано за растежните фактори, би трябвало да доведе до използването им като протектори на косъмчевите клетки.
3.2.3 Протеини на топлинния шок – HSP (Heat Shock Proteins)
Протеините на топлинния шок – HSP подпомагат защитата на организма срещу разнообразни метаболитни стресови ситуации (за по-пълен преглед вж Parsell и Lindquist 1993 (194)). Установени са също така и в кохлеята (195). Тяхното нарастване там се установява след топлинен стрес (196, 197), преходна исхемия и звукова травма (199).
Резултатите от различни проучвания сочат, че протеините на топлинният шок индуцират звуково протективни контра-регулаторни процеси във вътрешното ухо. Yoshida и сътр. (197) подложили мишка от вида CBA/CaJ на топлинен стрес (41.5 0С за 15 мин.). След което я изложили на звукова експозиция (8-16KHz, 100dB SPL за 2 часа). Измерванията на матричната РНК на протеина на топлинния шок тип 76, посредством полимеразна верижна реакция (PCR), показали 100 и 200 кратно увеличение на стойностите на HSP76 у топлинно стресираните животни, сравнени с контролите. Топлинно стресираните животни преди шумовата експозиция показали данни за многократно по-ниски поражения от акустичната травма.
4. Репаративни процеси в кохлеята
Когато обсъждаме процесите на репарация и регенерация в кохлеята, трябва ясно да отграничаваме тези две понятия. При репарацията имаме възстановяване на обратимо увредени клетки, докато регенерацията представлява ново формиране на необратимо увредени или загинали клетки. Докато обикновено, регенерация в кохлеята на бозайниците не се наблюдава, в нея са налице белези на протичащи репаративни процеси след акустична травма. Възстановяването след временна загуба на слуха, може би се основава на подобни репаративни процеси, протичащи в отцелелите клетъчни елементи в кохлеята.
Понеже границата между обратимо и необратимо увреждане е твърде тънка, а и напредването на загубите на клетки би могло да продължи до две седмици след травмата, съществува един посттравматичен времеви прозорец, в който и двата процеса протичат паралелно.
Поправка на стереоцилите
Съвременни експериментални изследвания, използващи in vitro модели, предполагат наличието на нов растеж на стереоцилиите (97, 205). Ето защо изглежда възможно някои косъмчеви клетки да възстановяват своите цилии след определена звукова травма. Съгласно наблюденията върху постнатални in vitro модели, актиновите структури на стереоцилиите се обновяват на всеки 48 часа (97).
Поправка на поддържащите клетки
Косъмчевите клетки са заобиколени от поддържащи клетки, върху които също са били наблюдавани обратими увреждания (85). Такива увреждания, обикновено се преодоляват за период от около две седмици след акустичната травма.
Синаптични репаративни процеси
След екситотоксично увреждане, в рамките на няколко дена би могло да възникне пълно морфологично и функционално възстановяване на синаптичните комплекси на вътрешните косъмчеви клетки (206). Възстановяване на синапсите може да се види и след акустично увреждане, като процесите на репарация се осъществяват още на първия ден след травмата (133).
Синаптичните репаративни процеси предизвикват особен интерес в патофизиологичен и терапевтичен аспект. След екситотоксично увреждане на кохлеята, възниква свръх експресия на рецептори за NMDA (по-точно на матрична РНК за NMDA рецептори). Тази свръхекспресия на NMDA рецептори може да повиши нивото на аксоналните изпразвания във влакната на слуховия нерв и по този начин да се постави началото на пост-травматичния тинитус (206). Експерименталното блокиране на NMDA рецептори, води до забавяне на репаративните синаптични процеси, а също така и до забавяне на функционалното възстановяване. Това показва невротрофният ефект на глутамата по време на пост-травматичната синаптогенеза. Следователно NMDA рецепторите и глутамата може би играят важна роля при възстановяването на правилна синаптична “архитектура” след понесена звукова травма (207).
Друг аспект на невроналните репаративни процеси във вътрешните слухови клетки е възстановяването на контактите им с латералните еферентни неврони (206). Подобно нещо обикновено се наблюдава в ембрионалното развитие на кохлеята. Поради тази причина се формулира хипотеза, че временното директно активиране на вътрешните косъмчеви клетки ще поощри репаративните процеси на латералните еферентации, посредством отделянето на глутамат от вътрешните слухови клетки (208).
Познанията за ембрионалното развитие вероятно ще доведат до създаването на фармакологични средства, с които би могла да се подпомогне правилната реинервация на вътрешните косъмчеви клетки с дендритите на невроните.
Регенерационни процеси в кохлеята
Липсата на спонтанна регенерация при човека
По принцип клетките на слуховия анализатор са способни на регенерация, но възстановителните процеси са генетично подтиснати (супресирани). Първите данни за това дойдоха от изследвания върху инхибитора на клетъчния цикъл фактор p27. Неговото подтискане се свързва с поява на митози в органа на Корти (209). Lövenheim разгежда на широко този проблем в статията си от 2003 (210).
Друга възможност е да се учим от видове, при които съществуват регенеративни процеси – такива напр. са птиците (211-216, 217, 198, 218-220, 221). Птичата кохлея представлява ценен биологичен модел, но остава отворен въпросът дали тя ще подпомогне постигането на убедителни отговори за човешкия охлюв и то на молекулярно ниво. Човешкият орган на Корти значително се различава от птичата базална папила и като конструкция и като клетъчна структура.
ПРЕВЕНЦИЯ
Превенция
Превенцията трябва да заема централно място при редуцирането на шумово индуцираната травма на слуховия анализатор. Под превенция разбираме, че върху тъпанчевата мембрана не попада или попада звук с ниски нива на интензитет. Намалението на шумовата експозиция би могла да се постигне чрез:
- Елиминирането на звуковите източници или
- Мероприятия намаляващи или поглъщащи шумовете от източника
- Избягване на звукови източници
- Използването на индивидуални защитни мерки
Информираност
За защита на младите хора, тийнейджърите и децата от рискове, предизвикани от дейности в свободното време и времето за почивка, трябва да се провеждат просветни програми от лекари, учители и социални работници, а също така и от информационните медии. Наскоро в публичното пространство на всички училища в Германия беше въведена здравно образователна програма посветена на шума. Тя е подготвена от Германския Федерален Център за Образование по Обществено Здраве. Следващи училищни образователни мероприятия бяха проведени под инциативата „Грижа за твоите уши”, от Немският съюз на специалистите оториноларинголози, а също и от Немското дружество по оториноларингология и хирургия на главата и шията. Тъй като метода на „заканителния показалец” не действа на младите, тези програми дават в ръцете на учителите полезни образователни средства. Истината, обаче е далеч от желаното – съветите на лекари и родители не оказват никакво влияние върху младежта. Едно скорошно изследване в Австрия показа, че информираните за рисковете от шумовото увреждане младежи слушат силна музика и носят индивидуални защитни средства в дискотеки и рок концерти точно толкова, колкото и неинформираните (222).
Регулаторни мерки
Регулаторните мерки засягащи шумовото въздействие в дискотеки, големи музикални събития, новогодишни тържества и т.н. са на плачевно ниво. Въпреки това има направени предложения от Германският Федерален Медицински съвет (223).
Федералният контролен закон за емисите (Blm-SchG), в своята поправка от м.юли 1995 в общи линии полага основите на главните мерки за контрол над шума. Според него всички хора трябва да бъдат защитени от шумови въздействия, които според своята природа, интензитет и продължителност нарушават обществения ред или носят рискове за обществото или околните. Освен това в 18то изпълнително постановление на Федералният контролен закон за емисите се отнася до заведенията за спорт и развлечения, които защитават живущите в околността на тези заведения. Според постановлението те трябва да бъдат управлявани по такъв начин, че да не влияят на околната среда и да бъдат обурудвани с най-съвременните известни средства за шумозащита.
Терапия І: Защитни подходи
Най-целесъобразните мерки за превенция на шумоиндуцираните увреждания са разбира се споменатите по-горе мерки за редуциране на нивата на попадаща върху тъпанчевата мембрана звукова енергия. Подобни мерки, обаче не са в състояние да предотвратят всички форми на предизвикано от шума увреждане на ухото. Присъщи недостатъци на такива мерки включват:
- много високи нива на интензитета, при които атенюиращият ефект на индивидуалните средства за защита се оказват недостатъчни
- пропагация на звука по костен път
- неоптимално напасване на ушните протектори
- ситуации, при които носенето на индивидуални шумозащитни средства е невъзможно (напр. военни действия, музиканти в оркестри)
- проблеми с поносимостта
Следователно е нужно провеждането на терапевтични процедури преди и/или по време на шумовата експозиция за предотвратяване на шумоиндуцирана загуба на слуха. Приложени рационално, предпазните процедури би следвало да блокират даден нежелан патофизиологичен път или да активират ендогентните протективни механизми.
Фармакологична протекция
Инхибиране на екситотоксичността
В главата за екситотоксичността беше показано, че блокирането на извънклетъчните магнезиеви йони, предоставя интересна теоретична възможност за въздействие върху NMDA рецепторните канали. Блокирането би следвало да действа срещу нежелания инфлукс в аферентия слухов неврон на ексцесивно количество калциеви йони през NMDA рецепторния канал. По този начин се предотвратява екситотоксичността от калциевите йони.
В експерименти с животни бяха наблюдавани позитивни корелации между серумните нива на магнезии и намалението на ефектите от хроничната шумова експозиция (224, 225). Прилагането на магнезии преди шумовата кспозиция редуцира морфологичните и функционалните увреждания от дадена звукова травма у морски свинчета (226; 227). Обяснението на този ефект, може би се основава на ролята, която играят магнезиевите йони в контрола на NMDA рецепторите, разположени по аферентните слухови нервни влакна – главната жертва на екситоксичността. Вруга възможност са ефектите на магнезиевите йони върху външните слухови клетки. (224). На табл.12 са представени резултатите от първото двойно сляпо, рандомизирано изследване от приложението на магнезиев аспартат (228). На триста здрави, млади войници е бил даван магнезиев аспартат по време на двумесечни военни стрелби. Даването на магнезия е било под формата на рандомизирано, плацебо контролирано, проспективно изследване. Истинската група е приемала веднъж дневно напитка, съдържаща 167мг от агента, докато контролната група е пиела плацебо. В плацебогрупата сигнификантно повече са се наблюдавали увреждания на слуха и то най-вече билатерлна слухова загуба. Не са били наблюдавани странични ефекти от приема на магнезий (228).
Друга възможност за терапевтична протекция ни предоставя фармакологичната мимикрия на допаминовите протективни ефекти. Както вече споменахме по-горе допаминът предпазва шумоиндуцираното увреждане на слуховия нерв посредством редукция на екситотоксичните ефекти (229; 230). Първите експерименти с животни, при които е бил използван допаминовия агонист piribedil (антипаркинсонов медикамент), по време на ексцесивна шумова експозиция, ясно показаха слухопротективните ефекти на медикамента. Последните са били оценени, не само на базата на прагови измервания, но и чрез електронномикроскопски наблюдения върху морфологията на аферентните и еферентнитесинаптични комплекси разположени върху аферентните слухови нервни влакна на морско свинче (230). Нещо повече – за клинична употреба са подходящи и NMDA рецепторни блокери (вж. Главата за екситотоксичността). Примери за такива агенти са caroverine и memantine. Тези вещества се обсъждат като вероятни средства за лечението на някои видове тинитус (вж. по-долу) (231; 232). Използвайки йонофоретични техники Oesterreichter и сътр. показаха в експерименти с животни, забележителните инхибиторни свойства на двете субстанции върху глутамат-предизвиканата, NMDA асоциирана активност на аферентните слухови нервни влакна (233).
Регулацията и контрола на екстрацелуларните концентрации на глутамата предоставя друга потенциална бъдеща възможност за предотвратяване на екситотоксично увреждане на кохлеята.
Антиоксиданти
Както вече споменахме, акустичната стимулация води до повишаване на реактивните оксидативни радикали в кохлеята, които от своя страна биха могли да иницират апоптоза (100; 101). Ако ендогенните антиоксидативни механизми (напр. глутатионовата система) не са в състояние да инактивират радикалите (25; 108), би могло да се приложат фармокологично активни вещества. Витамин С и салицилатите биха могли да се използват за тази цел, тъй като те действат като „чистачи” на свободните радикали. Нещо повече, докладвани са антиоксидативни свойства и за веществото caroverin.
Gilun-Sherki и сътр. през 2002 (235), публикуваха подробен преглед на стратегията за антиоксиднтно лечение при остри увреждания на централната нервна система. Табл.9 изброява някои антиоксиданти, проявили протективен ефект при звукова травма у животни.
Инхибиране на апоптозата
Въпреки че до сега бяха проведени твърде малко изследвания върху ролята на сигналните каскадни ситеми, иницииращи апоптозата на кохлеарните клетки, първите резултати с инхибиторите на тези сигнални каскади откриват нови бъдещи терапевтични възможности. Какго споменахме по-горе, апоптозата се регулира от гени и белтъци, към които принадлежат и каспазите. В настоящия момент се провеждат интензивни проучвания върху различни невронални заболявания (напр. болестта на Паркинсон) с цел установяването на това дали инхибирането на каспазните пътища би имало клинично значение (236).
При акустичната травма каспазите представляват потенциален обект на фармакологично интервениране (137). Друга възможност за предотвратяване или ограничаване на апоптозата след звукова травма е пътят на стрес активираните протеинкинази (237). Инхибиторите на тази сигнална каскада (известна още като JNK сигнален път) са в състояние да редуцират морфологичните и физиологичните последици на дадена звукова травма при експерименти с животни (145; 238).
Табл.12 Класификация на външните доказателства
| Ниво | Тип доказателство |
| І (a-c) | (a) систематичен преглед на рандомизирани контролни изследвания (b) индивидуално рандомизирано изследване (c) „всичко или нищо” |
| II (a-c) | (a) ситематичен преглед на кохортно изследване (b) индивидуално кохортно изследавне (c) „изследване на последиците” |
| III (a, b) | (a) систематичен преглед на изследвания върху клинични случаи (b) индивидуално изследване на клиничен случай |
| IV | Серии от клинични случаи |
| V | Експертно мнение |
Протекция чрез предекспозиционна акустична стимулация
От скоро, идеята за намаляване на чувствителността на слуховия анализатор към увреждащи звуци, посредством „каляването” му с предекспозиционен акустичен стимул, набира все по-голяма популярност (239).
Табл.13: Субстанции с протективен ефект при шумова експозиция – експерименти с животни
| Групи субстанции и субстанции | Механизъм/място на действие | Резултати/забележки | Литература (подбрана) |
| Антиоксидантни субстанции | |||
| 2-оксотиазолидин-4-карбоксилат | Цистеинов предшественик, осигурява цистеин за ендогенния синтез на глутамат | Морско свинче, системното приложение по време на пет дневна звукова травма намалява трайното повишение на праговете на слуха | Yamasoda и сътр.1998, (108) |
| N-ацетилцистеин | Цистеинов предшественик, осигурява цистеин за ендогенния синтез на глутамат; | Чинчила, системното приложение преди и след звукова травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Kopke и сътр.2000, (106) |
| салицилати | Инхибитор на циклооксигеназата | ||
| Глутатионов моноетилов естер | Доставя екзогенен глутатион | Чинчила, локалното приложение върху membrana tympani secundaria, преди звуковата травма оказва протективнто действие срещу импулсен шум | Hight и сътр.2003, (104) |
| R-фенилизопропил-аденозин | Агонист на А1 рецепторите за аденозин | Чинчила, локалното приложение върху membrana tympani secundaria, преди звуковата травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Hu и сътр.1997, (105) |
| Глутатионов моноетилов естер в комбинация с R-фенилизопропил-аденозин | Доставя екзогенен глутатион, в комбинация с агонист на А1 аденозинов рецептор | Чинчила, локалното приложение върху membrana tympani secundaria, преди звуковата травма оказва протективнто действие срещу импулсен и продължителен шум | Hight и сътр.2003, (104) |
| D-метионин | осигурява цистеин за ендогенния синтез на глутамат, „чистач” на свободни радикали | Чинчила, системното приложение преди и след звукова травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Kopke и сътр.2002, (107) |
| Ебселен | Съставен е от органичен селен, наподобява действието на глутатион пероксидазата, реагира с пероксинитрита, инхибира липидната пероксидация | Морско свинче, системното приложение преди и след звукова травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Pourbakht и Yamasoba 2003, (103) |
| Лазароид | Инхибитор на липидната пероксидация | Плъх, системното приложение преди и по време на звукова травма намалява промените в сумационния акционен потенциал на слуховия нерв | Quirk и сътр.1994, (323) |
| Манитол | Чистач на свободни радикали | Морско свинче, системното приложение преди и след звукова травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Yamasoba и сътр.1999, (109) |
| Дезфероксамин-мезилат | Хелатор на железни йони | Морско свинче, системното приложение преди и след звукова травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Yamasoba и сътр.1999, (109) |
| Невротрофини | Отселяване и клетъчно диференциране по време на ембрионалното развитие; контрол върху синапсите на невроните и сензорните клетки | ||
| GDNF | Морско свинче, локалното приложение върху membrana tympani secundaria, намалява трайното повишение на слуховите прагове и загубата на косъмчеви клетки, но само ако растежният фактор е бил приложен до 2 часа от акустичната травма | Keithley и сътр.1998, (278) | |
| GDNF | Морско свинче, системното приложение преди и след звукова травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Yamasoba и сътр.1999, (109) | |
| Невротрофин-3 | Морско свинче, интракохлеарното приложение преди, по време на и след звукова травма намалява трайното повишение на слуховите прагове и загубата на косъмчеви клетки | Shoi и сътр.2000, (324) | |
Табл.14: Представени са подбрани субстанции с протективен ефект при звукова травма. Веществата са прилагани преди, по време на и след ошумяване на животни. Апликациите са локални (интракохлеарно или върху мембраната на кръглото прозорче) или системно (орално или интраперитонеално). Много от субстанциите притежават по няколко механизма на действие. Ето защо ефектите на различните групи могат да се припокриват.
Невромедиатори и антагонисти на невротрансмитерите (антиекситотоксични субстанции)
| Piribedil | Допамин-2 антагонист | Морско свинче, интракохлеарното приложение по време на звукова травма намалява трайното повишение на слуховите прагове и загубата на косъмчеви клетки | d`Aldin и сътр. 1995, (230) |
| MK801 | Антагонист на NMDA рецепторите | Морско свинче, приложението преди звукова травма намалява трайното повишение на слуховите прагове и броя на подути нервни окончания, синаптиращи с вътрешните косъмчеви клетки | Duan и сътр. 2000, (325) |
| Carbamathione | Антагонист на NMDA рецепторите, разположени по първичните слухови неврони | Чинчила, системното приложение преди и след звукова травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Kopke и сътр. 2002, (107) |
| Riluzole | Антиглутаматергично действие | Морско свинче, локалното или системно приложение, преди и след звукова травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Wang и сътр. 2002, (326) |
| Caroverin | Антагонист на NMDA и AMPA рецепторите, чистач на свободни радикали | Морско свинче, топикалното приложение преди или след звуковата травма (но не по-късно от 24ч) оказва протективно действие върху слуха | Chen и сътр. 2003, (327) |
| MK801 | Антагонист на NMDA рецепторите | Морско свинче, системно приложение, след звукова травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Ohinata и сътр. 2003, (328) |
| Магнезий | Предотвратява калциевата интоксикация на слуховите неврони, посредством действието си върху NMDA рецепторите | Морско свинче, системно приложение, след звукова травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Scheibe и сътр. 2000, 2002; Haupt и сътр. 2002, 2003, (226; 227; 270; 272) |
Инхибитори на сигналните каскади на апоптозата
(програмирана клетъчна смърт)
| Leupeptin | Инхибитор на calpain | Чинчила, интракохлеарното приложение по време на звукова травма намалява загубата на косъмчеви клетки | Wang и сътр. 1999, (329) |
| CEP 1347 | Блокира c Jun-N-terminal kinase (JNK), антиапоптоично действие | Морско свинче, системно приложение, преди звукова травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Privola и сътр. 2000, (145) |
| D-JNKI-1 | Пептид, блокиращ MAP kinase от сигналната каскада на JNK | Морско свинче, интракохлеарното приложение преди, по време на и след звукова травма намалява трайното повишение на слуховите прагове и загубата на косъмчеви клетки | Wang и сътр. 2003, (238) |
Други субстанции
| Acetyl-L-carnitine | Поддържа митохондриалната биоенергетика, повишава нивата на Acetyl-CoA, карнитин и кардиолипин в митохондриите | Чинчила, системното приложение, след звукова травма намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки | Kopke и сътр. 2002, (107) |
| глюкокортикоиди | Антиапоптоично и противовъзпалително действие, имуносупресор, повишава неспецифичният белтъчен синтез, | Морско свинче, системното приложение след акустична травма подобрява функционалното възстановяване | Lamm и Arnold 1998, (343); d`Aldin и сътр. 1999, (330) |
| глюкокортикоиди плюс хипербарна оксигенация | Антиапоптоично и имуносупресорно действие, повишава неспецифичният белтъчен синтез, повишава се кислородната концентрация в тъканите | Морско свинче, системното приложение след акустична травма подобрява функционалното възстановяване | d`Aldin и сътр. 1999, Lamm и Arnold 1999, (330, 331) |
| Хидроксиетилово нишесте | обемен заместител на плазмата | Морско свинче, системното приложение след акустична травма подобрява функционалното възстановяване | Lamm и Arnold 2000, (332); |
| Диклофенак | Противовъзпалително действие | Морско свинче, системното приложение след акустична травма подобрява функционалното възстановяване | Lamm и Arnold 1998, (343); |
Нефармакологична протекция
| Звуково кондициониране | Непрекъсната или интермитентна експозиция на звук с ниски нива на интензитета, преди звуковата травма. Точният механизъм на действие е доста неопределен | Ефектите показват строга зависимост от параметрите на стимула и вида на животното. Намалява трайното повишение на праговете на слуха и загубата на косъмчеви клетки, но това се нуждае от допълнителни доказателства | Niu и Canlon 2000; Niu и сътр. 2003 (200; 240) |
Предпазването на слуховия анализатор с предварителна експозиция с терапевтично ефективен звук не изглежда невъзможно. Проблемът се състои в това, че все още има недостатъчно данни за това какви свойства следва да притежава подобен терапевтичен сигнал. Предварителните данни ни позволяват да предположим, че ако подобна протекция е възможна, тя би следвало да се предизвиква от един специфичен акустичен сигнал, който не е задължително да присъства във всекидневния живот или на работното място. Този специфичен звуков сигнал е неизвестен.
Проучвания
Miller и сътр. (239) в 16 последователни дни излагат котки на звукови стимули, прекъсвани равномерно от паузи. Те наблюдават намаление в промяната на праговете след шумова експозиция на 16-ия ден, сравнено с първия ден.
Налице са и данни за възможни протективни ефекти и от биохимична гледна точка. След стрес индуциране на протеини на топлинния шок, посредством акустично стимулиране, се наблюдава протекция към ексцесивно шумово въздействие (за подробности вж. по-горе) (197; 198). Тези наблюдения предполагат, че протеините на топлинния шок вероятно играят роля в редуцирането на чувствителността на слуховия анализатор спрямо увреждащи звукови стимули.
Няколко съвременни проучвания сочат, че продължителната или равномерно прекъсваната звукова експозиция с ниски, безвредни нива на интензитет могат да предизвикат протективни ефекти в слуховия анализатор. Този феномен е бил изпитан при различни видове бозайници, като мишка, зайци чинчила, морски свинчета, плъхове, а също така и хора (Niu и Canlon, 2002 (240)).
Парадигми на акустичното стимулиране
Различаваме две отделни парадигми на аукстичното стимулиране, чиято цел е редуцирането на чувствителността на слуховия анализатор към травматизираща звукова стимулация. Те се означават или като „кондициониране” или като „закаляване” на слуховия анализатор.
Звуково кондициониране: Това най общо се разбира, като продължително или интермитентно приложение на безвреден акустичен стимул (с нисък интензитет) преди излагане на увреждаща шумова експозиция. Този феномен е бил изследван при различни видове, като пустинен gerbil (241-243), плъх (244), морско свинче (245, 246) и човек (247).
Акустично „закаляване”: Това най общо се разбира, като интермитентно стимулиране със звукови нива, чиято гръмкост е достатъчна да предизвика временна смяна на праговете (ВСП). По време на ежедневна повтаряща се стимулация, наблюдаваната временна смяна на праговете става все по-малка и по-малка. В някои експерименти временната смяна на праговете не се появявала повече, независимо от непрестанното провеждане на ежедневната стимулация. Този феномен също така е бил наблюдаван при изследването на различни видове, напр. пустинни gerbils (248) и особено при чинчили (249-253). Трябва да отбележим, обаче че термините „звуково кондициониране” и „закаляване”, все още не се използват широко в литературата, а понякога дори се подменят твърде произволно.
Изследванията на тази тема се различават, в зависимост от вида на животните, параметрите на предхождащата стимулация, а също така и от параметрите на последващата аукустична травма (честотен спектър, интензитет, продължителност, дължина на паузата между кондиционирането/закаляването и травматичната звукова еспозиция и пр.). Ето защо данните о тези изследвания следва да се интерпретират по отделно и внимателно. Малки модификации на акустичните параметри, при едни и същи животни, водят или до никакъв или до изразен протективен ефект на звуковото кондициониране.
Механизъм на действие на предекспозиционното звуково стимулиране
През последните години се формираха няколко хипотези, обясняващи протективните ефекти на звуковото кондициониране. Те разглеждат ролята на мускулите на средното ухо и медиалната оливокохлеарна система, а също така и стабилизирането на разнообразни ендогенни кохлеарни протективни системи, като напр. антиоксидативните механизми, протеините на топлинния шок, промените в експресията на глутаматните рецептори, невротрофни фактори и калций буфериращи системи. Сега ще разгледаме някои от тях по-подробно.
Мускули на средното ухо: Добре известен факт е, че рефлексите в средното ухо редуцират силата на постъпващите акустични сигнали, посредством промени в импеданса (162). От тази гледна точка е ясно, че рефлексите на средното ухо вероятно играят роля в звуковото кондициониране. Три независими експерименти с животни изследваха протективните ефекти на звуковото кондициониране след сакрифициране на мускулите на средното ухо при пустинен gerbil (242) и чинчила (256), а също и след парализирането на тези мускули при морско свинче (257). И трите изследвания доказаха наличието на протективен ефект от кондиционирането, независимо от проведените операции. Следователно ролята на мускулите на средното ухо за този феномен е незначителна.
Медиална оливокохлеарна система: Ролята на оливо-кохлеарната система при звуковото кондициониране и закаляване, все още е неизяснена, а резултатите от експериментите – противоречиви. Сакрифицирането на оливокохлеарното снопче при чинчили води до по-големи временни и постоянни смени на праговете, а също така и до по-обширна загуба на косъмчеви клетки, в сравнение с животните с интактни еферентации (258). От друга страна, Kujawa и Liberman наблюдават по-минимални разлики у морско свинче (246). При тотално сакрифициране на всички оливокохлеарни снопчета било установено намаление в протективните ефекти на кондиционирането, докато при лезия само на кръстосаните снопчета, подобно отслабване на ефекта не било установено.
Експериментите със запушване на едното ухо, по време на звуковото кондициониране, водят до загуба на протективният ефект в него. Следователно кондиционирането е повече локален феномен, отколкото системен (259). От комбинациите на експерименти със звуково кондициониране и локално приложение на стрихнин, който деактивира оливокохлеарната система, Kujawa и Liberman, стигат до извода, че макар и оливокохлеарната система да участва в предпазването на вътрешното ухо от шумова травма, тя не играе роля в звуковото кондициониране (260).
Ендогенни антиоксиданти: Звуковото кондициониране води до увеличение на каталазата и глутатион редуктазата в кохлеята на чинчила. Следователно кондиционирането усилва антиоксидативните защитни системи в кохлеята (261).
Протеини на топлинния шок: След стрес-индуцирано нарастване на протеините на топлинния шок в кохлеята се наблюдават протективни ефекти срещу ексцесивни звуци. При това няма значение дали индукцията на тези протеини е била чрез топлинен стрес или посредством акустична стимулация (197; 198). Подобни наблюдения предполагат, че протеините на топлинния стрес вероятно играят роля в редуцирането на чувствителността на слуховия анализатор към уреждащо звуково въздействие, посредством предшестваща акутична стимулация.
Невротрофни фактори: Nam и сътр. Показаха увеличена експресия на GDNF (glial cell-line derived neurotrophic factor) в кохлеята на морско свинче, в отговор на ексцесивна акустична стимулация (184). В момента обект на интензивни изследвания е въпросът до каква степен този и другите невротрофни фактори оказват влияние при звуковото кондициониране и протектирането на слуховия анализатор срещу звукова травма.
Белтъците bcl-2: Предполага се, че антиапоптичните протеини от фамилията bcl-2 предотвратяват освобождаването на цитохром С и по този начин предотвратяват активирането на капсазите (140). Съвременните изследвания върху процесите на апоптозата в кохлеята, протичащи след акустична травма, с и без звуково кондициониране, разкриха една усилена генна експресия на гените за bcl-2 и намалено отделяне на цитохром С, след звуково кондициониране (200). Тези данни ни позволяват да предположим вероятната роля на bcl-2, като един акустично предизвикан, протективен, антиапоптичен фактор в кохлеята. Ако звуковото кондициониране действа посредством инхибиране на апоптозата, това би предоставило интересна възможност за възможни бъдещи терапевтични интервенции.
Заключение
Звуковото кондициониране (т.е. насоченото продължително или интермитентно акустично стимулиране с безвредни нива на звука, преди дадена акустична травма) ни предоставя възможност за намаление на степента на звуково индуцирана загуба на слуха. Това е възможно при прецизно определени и твърде диференцирани условия. Тези условия за човека, обаче, засега остават неизвестни.
Терапия ІІ: Лечение на внезапната глухота
За посттравматичните увреждания не съществува надеждна фармакологична терапия. Целта е да се осигури и/или развият фармакологични стратегии, базирани на известните до сега механизми на клетъчно увреждане, смърт и възстановяване. Тези стратегии би трябвало да действат върху субклетъчните и молекулярни промени, които настъпват след акустична травма и да стимулират процесите на възстановяване. За постигането на тази цел е нужно да се стимулират естествените механизми на протекция или да се подтиснат процесите на увреждане. Всяко едно бъдещо лекарство трябва да питежава тези свойства. В настоящият преглед ще разгледаме някои от фармакологично активните вещества, с които разполагаме в момента. На фигура 6 са представени острите метаболитни последици от една ексцесивна звукова експозиция и възможностите за елиминирането им. На табл.9 е представена извадка от експерименти с животни, свързани с възможностите за фармакологично предпазване.
Терапевтични стратегии
Ще разгледаме следващите терапевтични подходи:
- Активиране на белтъчния синтез, за нуждите на клетъчното възстановяване;
- Антиоксидативни стратегии;
- Стратегии предотвратяващи апопптозата (програмираната клетъчна смърт);
- Атиекситотоксична терапия;
- Противовъзпалителна терапия;
Активиране на белтъчния синтез, за нуждите на клетъчното възстановяване
Тук желаният резултат представлява постигането на специфично активиране на белтъци под формата на специфично увеличение на генната експресия. В тези процеси участват всички генни класове, чиято експресия се засилва при акустично увреждане (203). Тяхното фармакологично активиране или активирането им посредством методите на генната терапия може да се използва за увеличение на рибозомалната функция, нужна за осъществаването на белтъчния синтез. Биха могли да се активират също така и рибонуклеинови белтъци, да се ускори метаболизма на цитоскелетните белтъци (полипептидни неврофиламенти, тубулин-бета-5, „актин свързан протеин”, миозин, алфа-актинин. Под наблюдение са и белтъците, свързани с калциевия метаболизъм (калций свързващ протеин S 100A1, калмодулин 3, калпактин, анексин VІ). Не на последно място са и възможностите за активиране на белътъците натоплинния шок (HSP 74kD) (203). Едно увеличение в броя на общите актинови филаменти, би могло да подпомогне реконструирането на стереоцилиите и възстановяването на постсинаптичните окончания на слуховия нерв, увредени след звукова травма.
Като цяло, неспецифичен белтъчен синтез се индуцира от кортизона и неговите производни (264). Приложен в достатъчно големи дози (за човек поне 250мг преднизолон) кортикостероида достига пространствата на вътрекохлеарните течности, дори чрез перорален прием (265; 266; 267). Съгласно консенсуса за внезапната приемна глухота на Немското дружество за ОРЛ и хирургия на главата и шията, прилагането на високи дози преднизолон представлява част от модерната терапевтична концепция. Не бива да забравяме обаче, че една звукова травма не е еднаква с идиопатичната внезапна приемна глухота. Но все пак, поради факта, че при някои пациенти с внезапна приемна глухота са налице подобни цитопатологични характеристики, с тези предизвикани от острата звукова травма, би могло да се изполват и подобни терапевтични подходи.
Антиоксидантна терапия
Високореактивните кислородни радикали, които водят до апоптоза, биха могли да се елиминират с налични в настоящия момент „чистачи на кислородни радикали”. Съгласно споменатия вече консунсус, в концепциите на съвременното лечение влиза и алфалипоновата киселина. Други чистачи на кислородни радикали са витамин С и салицилатите. Веществото кароверин (caroverine)действа като чистач на хидроксилни радикали, а също така проявява отопротективни ефекти при звуково травмирани животни (327).
В момента обект на интензивни проучвания са възможностите за:
- Екзогенно приложение на антиоксидативни ензими и на техните прекурсори;
- Стабилизиране на ендогенните антиоксидативни системи;
- Екзогенно приложение на хелатори на метални йони;
- Екзогенно приложение на инхибитори на липидната пероксидация;
Стратегии, предотвратяващи апоптозата, посредством инхибирането на специфични протеази
Подобна терапия все още не съществува. Различни протеази играят важна роля за апоптозата. Тук влизат семействата на капсазите и на калпаина. Следователно инхибирането на тези протеази ни предоставя:
- фундаментална цел за интервениране, при която ще се предотврати програмирана клетъчна смърт във вътрешното ухо, настъпваща след акустично увреждане;
- отправна точна в лечението на звуковата травма (268);
проучват се следните терапевтични стратегии:
- инхибиране на капсазите
- инхибиране на протеазата калапаин;
- стимулиране на експресията на антиапоптични гени (Bcl-2);
Антиекситотоксична терапия
Съществуват блокери на NMDA рецептори, удобни за клинична употреба (ролята на NMDA рецепторите е изяснена в отдела за екситотоксичността). Тук влизат кароверин (caroverine)и мемантин (memantine). В частност, те се предполагат за употреба при лечението на тинитуса (вж. по-долу). Тези медикаменти вероятно са подходящи и при лечението на острата звукова травма. В противоречие на това е фактът, че NMDA рецепторите са нужни за възстановяването на нервните окончания (207).
В отдела за протекцията е посочено, че блокирането на NMDA рецептори посредством екстрацелуларни магнезиеви йони, предоставя нова интересна възможност за лечение с очевидни отопротективни свойства. Блокирането на тези рецептори би следвало да окаже позитивно влияние върху нежелания калциев инфлукс в аферентните окончанията на влакната на слуховия нерв. Постъпват обнадеждаващи резултати от първите двойно слепи и рандомизирани проучвания с прилагане на магнезиев аспартат (228; 269).
Съвременни експерименти с животни подтвърдиха, че ранното посттравматично приложение на магнезий (след импулсна звукова травма) води до намаление на морфологичните и функционални увреждания на вътрешното ухо (270-272).
Бъдещите перспективи за изследвания включват възможностите за фармакологично унаподобяване на споменатия по-горе протективен ефект на допамина. Това се осъществява с използването на допаминови агонисти (230).
Друга възможност за предотвратяване на кохлеарно увреждане ни дава регулирането и увеличението на глутаматната концентрация в извънклетъчните пространства. Съществуват следните цели за фармакологично интервениране, които биха могли да предотвратят екситотоксично увреждане след прекомерна звукова експозиция:
- Възстановителните процеси на пре- и постсинаптичните връзки между вътрешните косъмчеви клетки и аферентните дендрити на първичния слухов неврон;
- Синаптичните връзки на латералната еферентна система с тези дендрити и
- Самите вътрешни косъмчеви клетки. Съгласно съвременните проучвания върху повторното поемане на глутамат от синаптичната цепка, вероятно екситотоксичността се дължи на дефекти на белтъци, разположени по клетъчната мембрана. Тези протеини отговарят за обратното поглъщане на възбудни аминокиселини (273).
- Нещо повече – между механичната свръхстимулация и ексцесивното освобождаване на глутамат съществува етап, върху който би могло да се окаже фармакологично въздействие. Този етап е нахлуването на калциеви йони през волт-зависимите калциеви канали, които предизвикват екзоцитозата на глутамат (274). Повече от 90% от тези канали принадлежат към клас D, тип L калциеви канали (275; 276). Добре известните тип L калциеви антагонисти – нифедипин и нимодипин, оказват слабо влияние върху калциевите канали, които са разположени по мембраните на вътрешите косъмчеви клетки. Все още не са открити селективни антагонисти за каналите от клас D, поради което върху тях не може да се окаже фармакологично въздействие.
Противовъзпалително лечение
То е индицирано, когато анамнестично и от аудиограмата се предполага наличието на некроза. Отделно от другите конвенционални противовъзпалителни средства поставяме противовъзпалителните ефекти на кортизона. Заедно с гореспоменатото активиране на белтъчния синтез, чрез него постигаме два желани, макар и неспецифични ефекта.
Невротрофни фактори
Като цяло невралните растежни фактори стимулират клетъчното отселяване и растеж. Те могат да се доставят в организма посредством: 1) екзогенно приложение; 2) генетична свръх експресия; 3) стимулиране на ендогенната продукция (277). Приложени локално, преди звуковата травма, растежните фактори осъществяват изявена морфологична и функционална протекция при експерименти с животни (278).
Тези резултати будят надежда, че невротрофините от централната нервна система могат, също така да бъдат използвани и върху слуховите сензорни клетки и неврони.
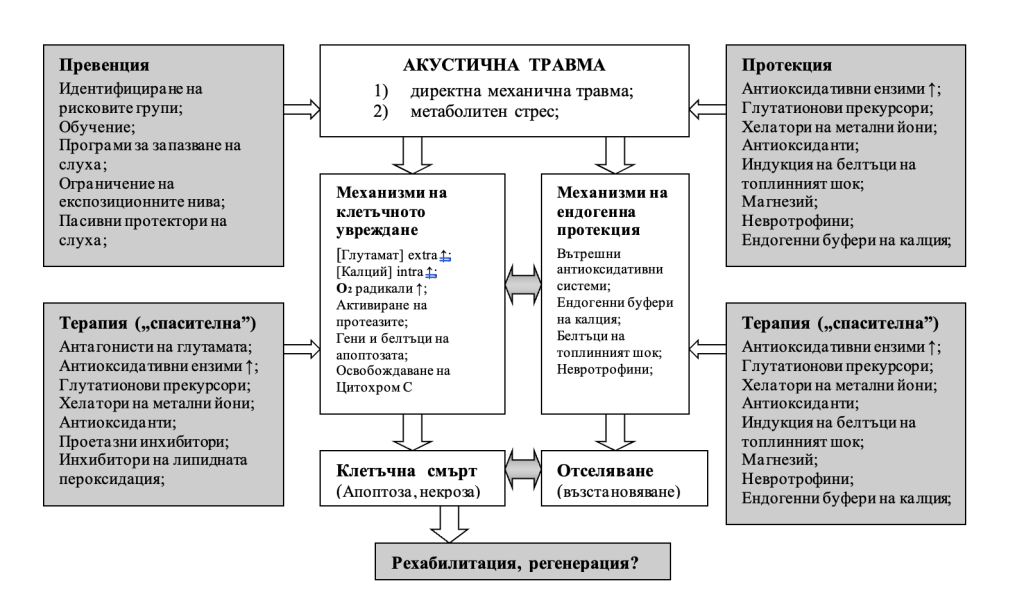
Фиг. 6 Допълнително към директното механично увреждане на структурите на вътрешното ухо, ексцесивната звукова стимулация води, също така, до възникването на дългодействащ метаболитен стрес. Този процес индуцира сигнални каскади, които водят или до клетъчна смърт, или отселяване на клетка с клетъчно увреждане или до възстановяване и излекувдане. Взаимодействието между множество фактори предопределя кой възможен сигнален път ще протече в сензорните и екстрасензорните клетки на кохлеята. Тези процеси предоставят възможност за терапевтично въздействие, което би могло да е протективно или лечебно. Когато изследваме възможностите за нови терапевтични стратегии, следва да помним, че тези сигнални каскади протичат по-скоро една вместо друга, отколкото едновременно.
Системна лекарствена терапия
Известните за момента конвенционални медикаменти биха могли да се прилагат системно. Бъдещите терапевтични форми, обаче е възможно да изискват топикално приложение на цитобиологични или геннотерапевтични агенти. Следващият отдел е посветен на локалното лечение.
Локална терапия
Стратегии на приложение
Настоящите елементарни познания върху патофизиологията и патобиохимията на приемната загуба на слуха нараснаха значително, благодарение на методите на клетъчната и молекулярна биология. Те отвориха, заключени преди това врати, като съвременните изследвания са насочени към използването на клетъчни биологични и генни терапевтични агенти, за лечение на приемната глухота, а също така и на шумово предизвиканата загуба на слуха. Експерименталното използване на тези агенти ни разкри, че локалното им приложение е по-ползотворно, като същевременно се постига редуциране на системните ефекти и оптимизиране на терапевтичните резултати. Нуждата от локално приложение стана явна при осъществяването на пренос на гени в кохлеята при лечение на заболяванията на вътрешното ухо (279-282).
Откри се ново поле за изследвания, а именно локалното прилагане на лекарства в средното ухо, за лечение на вътрешното ухо. За разработването на бъдещи ефективни терапии е нужно изучаването на фундаменталните механизми на транспорт на вещества и субстанции от средното към вътрешното ухо, а също и на фармакокинетиката на самото вътрешно ухо. В сратегиите на приложение влиза интратимпаналното инжектиране през тъпанчевата мембрана самостоятелно или, като част от тимпаноскопия. Апликациите могат да се осъществяват през частично или напълно имплантируем катетър и помпа. Интратимпаналното инжектиране може да бъде еднократно или повтарящо се, както вече от години се прави с гентамицина при лечението на болестта на Ménière (283).
Контролът на субстанциите в средното ухо е от изключително значение.
Контрол на субстанциите в средното ухо
Фармакокинетика на вътрешното ухо
Публикациите, свързани с фармакокинетичните принципи на вътрешното ухо, след локално приложение на медикаменти върху кръглото прозорче са малобройни. Някои проучвания описват на пропускливостта на мембраната на кръглото прозорче за различни субстанции, в зависимост от молекулярното тегло и електричен заряд (вж. статията на Goycoolea, 2001 (294)). Рядко се срещат количествени оценки за пермеабилитета на мембраната на кръглото прозорче и промените на концентрациите с времето вътре в структурите на вътрешното ухо. Някои автори публикуваха концентрационни криви след локално приложение върху мембраната на кръглото прозорче (266; 267; 295). Трябва да отбележим обаче, че вземането на проби от вътрешното ухо е технически трудно изпълнимо и често има наличие на артефакти (296). Използването на компютърни симулации на разпределението на субстанции в течностите на вътрешното ухо, спомагат за изяснявето на този проблем (286; 287). На тази база могат да стъпят експериментите, които сравнявняват и усъвършенстват различните начини за локално приложение на медикаменти върху мембраната на кръглото прозорче.
Терапия ІІІ: Лечение на загубата на слуха от хронична шумова експозиция
Слухови апарати и инпланти
Съвременните лечебни процедури за хронично намаление на слуха включват поставяне и настройка на слухови апарти или имплантиране на екетронни слухови импланти при всички случаи, където тези средства са индицирани (297; 298).
Регенериране
Все още не не съществува регенеративна терапия, при която да се осъществява de novo формиране на външни косъмчеви клетки. Учени, инспирирани от факта, че при някои видове се наблюдава частично възстановяване (напр. птици), публикуваха научни резултати сочещи, че възстановяването на външни косъмчеви клетки в кохлеята на израстналия индивид не е чак толкова невероятно. Така напр. наблюдавани са явления на клетъчна пролиферация в кохлеята след загуба на фактора на клетъчния цикъл p27 (209). Подробности за съвременните достижения при регенеративните терапевтични подходи могат да се намерят в публикуваните разработки на Loewenheim, 2003 (210) или на Minoda и сътр. 2004 (344).
Лечение на придружаващите заболявания
В известен брой от хронично засегнатите индивиди се наблюдават придружаващи състояния, които утежняват загубата на слуха. Макар и редки, по принцип тези разстройства са същите, наблюдавани при тинитуса. Ето защо те биват разглеждани в следващия отдел, посветен на тинитуса.
Тинитус
До този момент, основна тема на настоящият преглед бе изключително загубата на слуха. Близко до ума е че в основата на слуховата загуба и шума в ушите лежат подобни периферни патофизиологични и биологични механизми. Това се отнася и за изолирания тинитус, който би могъл да предхожда появяващата се по-късно загуба на слуха. Слуховата загуба за тесен честотен диапазон (напр. между честотите, измервани при тонална прагова аудиометрия) би могла да остане неустановена при едно аудиологично изследване.
Остър тинитус
При звуково предизвиканият остър тинитус се прилагат същите превантивни и терапевтични методи, каквито се използват и при внезапната глухота.
Хроничен тинитус
Подобна ситуация имаме и при хроничния тинитус, тъй като единственият засегнат орган е кохлеята. За разлика от изолираната загуба на слуха, обаче при много от индивидите с хроничен тинитус се появява и една допълнителна вторична централизация (299; 300).
Съществуват следните предположения за патофизиологичната основа на тази централизация:
- Централна, предимно когнитивна чувствителност (модел на Zenner) или
- Централно усилване на тинитусния сигнал (модел на Jastreboff).
Нещо повече – както в случая с изолираната загуба на слуха, възможно е и
- Физиологично преодоляване на нарушението. Може да се появи и коморбидност.
Централно усилване на тинитуса
Моделът на централното свръхактивиране на тинитуса предполага обширно патологично увеличение на активността на тинитусния сигнал в пътищата на слуха. Специфичното усилване на тинитусната активност води до възприемане на патологична гръмкост (т.нар. фантомна перцепция) на тинитуса. Приема се, че в основата на повишената активност лежат неволеви централни асоциации на тинитусните сигнали, особено при силно изразени емоции. Можем да сме благодарни на Ястребоф, а по-късно и на неговия колега Хейзъл, за постигнатите първи достижения върху този модел (301; 302). Изхождайки от своя модел, те предлагат т.нар. акустична тренировъчна терапия (вж. по-долу) действаща на възприятно ниво.
Централно сензитиране
По-съвременният модел на централното сензитиране (очуствяване) не предполага наличието на тинитусно свръхактивиране. Тук централна роля играе когнитивната свръхчувствителност (сензитиране) спрямо тинитусния сигнал. Приема се, че тази свръхчувствителност се дължи на намаление на познавателния (когнитивен) праг за тинитуса (303; 304). Подобно на активационния модел и тук несъзнателните емоционални асоциации играят важна роля. Тук обаче, на когнитивно ниво, са въвлечени пет важни съзнателни асоциации и връзки: (i) готовност за възприемане на тинитуса, като (ii) нещо лошо и (iii) непредсказуемо, водещо до (iv) загуба на контрол и (v) страх (вж. Табл.15). предполага се, че подобни асоциации водят до намаление на прага (305; 306).
Табл.15 Сензитиране и десензитиране
| сензитиране | Патофизиологични реакции | Десензитиране |
| Възбуда | Патофизиологично засилено внимание | Неврофизиологично дефокусиране |
| Патофизиологична моторна възбуда | Мускулна релаксация | |
| Коморбидност (напр. нарушение на съня, стрес) | Психосоматично лечение | |
| Тинитуса се възприема като: | ||
| Пагубен и непредвидим | Неадекватна оценка (болестен модел) | Корективна терапия (напр. обсъждане, преоценка) |
| Загуба на контрол | Неадекватно справяне с проблема | Копираща терапия |
| страх | Неадекватна емоционална реакция | Емоционално дефокусиране |
Сензитирането, представлява фундаментален неврофизиологичен механизъм на финалният познавателен път на слуха, който в този случай, води до поява на патологична свръхчувствителност при възприемането на тинитуса. Това сензитиране е последица от специфичните централни неврофизиологични познавателни процеси, базирани на пластичността на централния отдел на слуховия анализатор (305; 306).
Коморбидност
При хроничната, шумово индуцирана загуба на слуха, а още повече и при хроничния тинитус се наблюдават множество придружаващи състояния. На табл.16 са изложени някои от тези състояния.
Табл.16 Списък на типичните последици и коморбидности от тинитуса
| Загуба на самоконтрол |
| Депресивно настроение, депресии, блокиране |
| Катастрофични мисли, усещане за безпомощност и безнадеждност |
| Напрежение, неспокойствие |
| Психосоциално отдръпване |
| Криза на самооценката |
| Тревожност |
| Прекъсване на общуването |
| Прекъсване на приятелства |
| Връзки, усилващи тинитуса |
| Нарушения на слуховото възприятие, изкривяване, хиперакузис |
| Загуба на вътрешния мир и спокойствие |
| Загуба на способността за концентрация |
| Ограничени ресурси за копиране на състоянието |
| Неправилна оценка на общественото мнение |
| Липса на самоувереност |
| Негативна оценка на собствените постижения |
| Нарушение на съня |
| Напрежение в гръбнака |
| Бруксизъм, напрежение в дъвкателната мускулатура и темпоромандибуларинет стави |
| Главоболие |
Лечение
За лечение на тинитусната централизация, в настоящият момент се използват два вида обучителни процедури. Всяка една от тях е основана върху някой от горепосочените неврофизиологични модели: пасивна аукстична тренировъчна терапия на тинитуса (ПАТТТ) и активна десензитираща терапия на тинитуса (АДТТ). Последната е една невроотологична когнитивна поведенческа терапия. Целта и на двете терапии е пациента да свикне с тинитуса. От неврофизиологична гледна точка, свикването представлява специфичен обучителен процес (305). Хората се обучават по-ефективно, когато участват активно и по собствена инициатива (т.нар. специфично когнитивно поведение), вместо пасивно да получават информация и звуков сигнал (306).
Пасивна обучителна терапия: акустично трениране
Според постулатите на Ястребофф и Хейзъл, целта на акустичното трениране е да редуцира повишената неврална активност, предизвикана от тинитуса, посредством привикване към един външен звуков сигнал (302; 308). Обикновено се използва пасивно, няколко часово, всекидневно излагане на бял шум в продължение на месеци. Тази терапия изисква и допълнително обсъждане на насоките на лечението “лице в лице” с пациента, при което на него се предоставя подходяща информация, свръзана с осъзнаването на клиничното му състояние и целите на лечението (табл.17) (309).
Табл.17: Терапевтични принципи на трениращата терапия
| Патофизиология | Терапевтичен принцип |
| Патологично засилено възприемане | Акустично трениране |
| Неадекватна оценка (болестен модел) | Обсъждане |
В постулатите на Ястребофф и Хейзъл не влизат допълнителни терапевтични процедури, като: групова терапия, поведенческа терапия или психотерапия, поради което те не следва да се приемат, като част от акустичното трениране. В Германия, пасивната обучителна терапия, нерядко се комбинира със споменатата по-долу когнитивно-поведенческа терапия. В този случай, вече не става дума само за просто акустично трениране (310).
За инструменталното лечение на тинитуса са разработени огромно количество устройства (напр. Noiser®, Tinnitus Control Instrument®), слухови апаратчета, тинитусни инструменти (комбинация от маскировъчно устройство и слухов апарат). Тинитусните инструменти биха могли да се превключват на слухопротезиращ режим или и на двете функции едновременно (311).
Липсват проспективни, рандомизирани контролирани проучвания, притежаващи задоволителна статитстическа мощ (315). Според неексперименталните емпирични наблюдения, 6 часовото ежедневно ползване на тинитусно устройство за 12 месеца, облекчава психосоматичния стрес и повишава качеството на живот у приблизително 40-80% от пациетните (308; 311; 312).
За отбелязване е обаче, че авторите получават същите резултати и когато пациентите преминават единствено обсъждането на насоките на лечението, без основната акустична част на тренировъчната терапия. Когато обсъждане липсва, настъпва драстичен обрат в резултатите от лечението (313; 314). Това показва, че когнитивната част от обсъждането на акустичната терапия полага основата на терапевтичния ефект (Wilson и сътр. 1998).
Тези резултати ни подсказват, че следва да гледаме по-критично на ползите от процедурите с бял шум. Ако отхвърлим, обаче устройствата за бял шум, остава единство когнитивният терапевтичен елемент и следователно по дефиниция, вече не става дума за акустично трениране (лечение без прилагане на звук, вече не е пасивна акустична терапия). В следващият отдел ще дискутираме ефектите върху десензитирането, получени от модерната когнитивна терапия.
Активна терапия: когнитивно десензитиране
Както подсказва името, това колективно название (тинитусна десензитираща терапия) включва процедури, водещи до когнитивно десензитиране. Като резултат от активните, поведенческо-медицински процеси, които специфично влияят върху тинитусното разпознаване (чрез активно, специфично познавателно поведение от страна на пациентите), целта е да се повишат праговете на разпознаване до степен, при която би могло да се достигне свикване (хабитуация) с тинитуса. Както вече споменахме, това представлява един обучителен процес. За целите на този обучителен процес се използват установени, типични за тинитуса, когнитивно-поведенчески процедури (309; 313; 315; 316). Ето защо, тази терапия изисква активно поведенческо коопериране от страна на пациента. Активното съдействие води до значително по-ефективен процес на обучение, отколкото пасивната акустична тренировъчна процедура (306). Поради особеностите на тинитуса, огромната част от лечебните процедури имат типично отоневрологично съдържание (303).
Целта на провежданите когнитивно-поведенчески процедури е да увеличат праговете на разпознаване на тинитуса, така че, т.нар. контролна система с ограничен капацитет, която е свързана със слуховия анализатор, да не бъде повече заета от сложното тинитусно разпознаване. Съвременните изследвания върху физиологията на мозъчното възприятие, напр. от Birbaumer (305), показаха, че поради наличието на контролната система с ограничен капацитет, централните отдели на слуховият анализатор са в състояние да разпознават само един единствен модел на комплексен стимул в определено време. Забележителното откритие на тази корово-подкорова система се използва в клиничната практика. Ако сложното тинитусно разпознаване (което е негативен процес) се замени от друго сложно стимулно разпознаване, то негативното тинитусно разпознаване се измества от контролната система с ограничен капацитет (освобождаване). По аналогия с фармакологията, този процес би могъл да се опише, като конкурентно инхибиране на тинитусното разпознаване (303). Типичен познавателен антагонист е позитивното въображение (315). Това е заместваща алтернатива, произведена от мозъка. Тя активно се изработва и тренира в течение на 5 до 15 часа курс на лечение (313; 315).
Вторият подход е когнитивното тинитусно модифициране. След когнитивната модификация, тинитусът е позитивно натоварен, което замества негативното му разпознаване. Терапията изисква доста време, за да могат процесите на изместване на тинитуса (индуцирани от когнитивното модифициране и/или от когнитивният антагонист) да заемат трайно място в дълговременната памет на слуховата система. След като запамети позитивното въображение или тинитусната модификация, пациентът се учи да реагира към своя тинитус, посредством извличане на позитивно въображение или на тинитусна модификация (процес на освобождаване). В своето начало терапията е активна и наистина e доста изнурителна за пациента. Ако реакцията се повтаря упорито за дълъг период от време, изместването на тинитуса става автоматично, т.е. без каквото и да било волево усилие (привикване, свикване). Постъпващият тинитусен стимул се задържа за няколко милисекунди в сензорната памет. Това предизвиква терапевтично породена реакция към стимула, т.е. заученото изместване на тинитуса, индуцирано от когнитивната тинтусна модификация и/или от дадения когнитивен антагонист, се задейства напълно автоматично. Ето защо тинитуса се игнорира и по дефиниция се достига до привикване (хабитуиране) към тинитуса, т.е. обратното на сензитирането (303). Сензитирането и хабитуирането се разглеждат, като антагонистични неврофизиологични процеси (305). Пътят, който терапията следва от сензитирането до хабитуирането, се означава като десензитиране. Терапевтичният резултат представлява хабитуиране, съчетано с преодоляването на тинитуса.
Съгласно критериите за валидност на доказателствената медицина (evidence based medicine – EbM, табл.12) лечебните процедури на невроотологичната когнитивна терапия на тинитуса са на ниво ІІb. Бяха публикувани две висококачествени, проспективно контролирани проучвания (313; 315). Kroener-Herwig и сътр., както и и Delb сътр., приложиха лечебните подходи, използвани при десензитиращата тинитусна терапия за контролирана група от изследвания, предприемайки постепенен модификационен процес, с цел оптимизиране на процедурата. Психосоматичният тинитусен стрес и дневното времетраене на възприятието, бяха намалени, като се достигна повишение на качеството на живот.Оценка на тинитуса по скалата на Goebel-Hiller/Hallam спадна от 49,5 на 34,6 (313).
Обобщение за клиничната практика
Важно е специалистите – оториноларинголози да са запознати с патофизиологичните процеси протичащи при звуковата травма. От изключително значение е осъзнаването на факта, че резултатът от шумовата свръхекспозиция, води до увреждане или разрушаване на каскадите на клетъчния метаболизъм във вътрешното ухо, като в тези процеси участват патологични явления, като оксидативен стрес, екситотоксичност и апоптоза.
На базата на това познание за патофизиологичните процеси, лекарят-клиницист ще може да изгради правилен модел на болестта, засегнала пациента. Освен това в него по-лесно ще се изгради превантивно мислене, което ще го ангажира да съветва децата, младежта и възрастните за опасностите, свързани с прекомерното излагане на високоинтензитетни звуци и шумове.
Независимо от важните нормативни мерки за предпазване от прекомерно силни звуци, лекарят не трябва да забравя и за химическите вещества, които действат заедно с акустичния стимул и допринасят за допълнителното професионално увреждане на вътрешното ухо. Освен това, звуковият стрес получаван в свободното време (дискотеки, рок концерти, фойерверки и пр.) намалява ефективноста на предпазните мерки, които се вземат на работното място, а именно – намалява се времето за почивка и възстановяване на слуховия анализатор. Лекарят клиницист би трябвало да изисква промени в законодателстовото, които да гарантират адекватни нормативни мерки, защитаващи децата и младежите.
Ето защо шумът през свободното време се превръща във важен аспект от общественото здраве: повече от 10% от младежите и младите възрастни вече са заплашени от загуба на слуха и разбираемост на речта, още към средата на втората декада от своя живот.
От медикаментите, които са насочени срещу неизбежната звукова експозиция, магнезиевият аспартат, се доказа, като средство с най-значителен ефект и доказателствено ниво Іb за пре- и параекспозиционна профилактика (преди и по време на шумовата експозиция).
Кортикостероидите са най-подходящото лечение на острата следекспозиционна фаза на акустичната травма. Както вече споменахме, те стимулират неспецифичния белтъчен синтез в кохлеарните клетки, а също така притежават и мощно противовъзпалително действие.
Допълнително, алфа-липониевата киселина прекъсва патологичните пътища, водещи до апоптоза (прекъсва началото на програмираната клетъчна смърт). Това става благодарение на антиоксидативните свойства на тази киселина.
Налице са и рационални доказателства за ползата от инхибиторите на NMDA рецепторите. По този начи може да се блокират явленията на екситотоксичност, протичащи в аферентните влакна на слуховия нерв. Терапията с тези инхибитори, трябва да започне поне 24 часа след акустичната травма и да продължи не повече от 1 седмица. По-продължителна терапия би могла да подтисне желаното постекспозиционно възстановяване, в което NMDA рецепторите участват активно.
За лечението на хроничната загуба на слуха, единственото с което разполагаме до момента са слухопротезиращите апаратчета и електронните импланти. Все още не са въведени в рутинната клинична практика специфични субстанции, регенериращи клетките в кохлеята. Съвременните изследвания обаче, не изключват създаването на подобни медикаменти в бъдеще.
Хроничният тинитус представлява самостоятелен проблем. При него може да се развие вторична централизация, като част от хроничният комплексен тинитус. Основана на най-съвременните неврофизиологични концепции, невроотологичната когнитивна десензитираща терапия заема основно място при лечението на хроничният тинитус. Нейните цели включват редуциране на праговете на разпознаване на тинитуса.
Литература:
- Davis AC, Fortnum HM, Coles RA,
Haggard MP, Lutman ME. Damage
to hearing arising from leisure noise:
a review of the literature. Report pre
pared for the Health and Saftey Exec
utive by the MRC Institute of Hearing
Research, Nottingham. London: Her
Majaesty’s Stationary Office 1985.
- Babisch W, Ising H. Musikhorge-
wohnheiten bei Jugendlichen. Z
Larmbekampfung 1994; 41:91-97. - Ising H, Babisch W, Hanel J, Kruppa
B, Pilgramm M. Empirische Untersuc
hungen zu Musikhorgwohnheiten von
Jugendlichen. HNO 1995; 43(4):244-
249. - Bickerdike J.Gregory A. An evaluation
of hearing damage risk to attenders
at discotheques. Report. Leeds Poly-
technical School of Constructional
Studies Dept Environment 1980. - Smoorenburg GF. Risk of noise-in
duced hearing loss following expo
sure to Chinese firecrackers. Audiol-
ogy1993;32(6):333-343. - Maglieri DJ, Henderson HR. Noise
from aerial bursts of fireworks. J
Acoust Soc Am 1973; 54(5):1224-
1227. - Just T, Pau HW, Kaduk W, Hingst V.
Schalldruckpegelmessungen und
Impulsdauerbestimmungen handel-
sublicher Schreckschusswaffen. HNO
2000; 48(12):943-948. - Rothschild MA, Dieker L, Prante H,
Maschke C. Schalldruckspitzenpegel
von Schussen aus Schreckschuss
waffen. HNO 1998; 46(12):986-992. - Byl FM, Jr. Sudden hearing loss: eight
years’ experience and suggested
prognostic table. Laryngoscope 1984;
94(5 Pt 1):647-661. - Plontke S, Herrmann C, Zenner
HP. Gehorschaden durch Silvester-
Feuerwerkskorper in der Bundesre-
publik Deutschland zur Jahreswende
1998/99. HNO 1999; 47(12):1017-
1019.
- Fleischer G, Mueller R, BacheT, Hep-
pelmann G. Auditory effets of some
Millenium celebrations in Germany.
Zeitschrift fuer Audiologie, Audiologi-
cal Acoustics 2003; 42:106-116. - Beyer P, Schubert M, Plontke S, Ze
nner HP. Zivil- und strafrechtliche As-
pekte von Gehorschaden durch Sil-
vesterfeuerwerkskorper. Bundesge-
sundheitsbl-Gesundheitsforsch-Ge-
sundheitschutz 2003; 46:59-62. - PfefferC, DietzK, Zenner HP, Plontke
S. Acoustic trauma due to New Year’s
firecrackers – long term results of an
epidemiologic study. Abs. DGHNO
2003. Eur.Arch.Otorhinolaryngol. 259,
481.2002. - Plontke S,ScheiderbauerH,Vonthein
R, Plinkert PK, Lowenheim H, Zenner
HP. Erholung der Horschwelle nach
Knalltrauma durch Feuerwerkskor-
per und Signalpistolen. HNO 2003;
51(3):245-250. - Mrena R, Savolainen S, Kuokkanen
JT, Ylikoski J. Characteristics of tinni
tus induced by acute acoustic trauma:
a long-term follow-up. Audiol Neuroot-
ol2002;7(2):122-130. - Gupta D, Vishwakarma SK. Toy
weapons and firecrackers: a source
of hearing loss. Laryngoscope 1989;
99(3):330-334. - Stockwell C.W., Ades H.W., Engstrom
H. Patterns of hair cell damage af
ter intense auditory stimulation. Ann
Otol Rhinol Laryngol 1969; 78:1144-
1168. - Beck C. Kernveranderungen der
Haarzellen nach Beschallung. Arch
Ohr Nas Kehlk Heilk 1955;
167:262-267.
- Beck C, Michler H. Feinstrukturelle
und histochemische Veranderungen
an den Strukturen der Cochlea beim
Meerschweinchen nach dosierter Re-
intonbeschallung. Arch Ohr Nas Kehlk
Heilk 190; 174:496-499. - Spoendlin H. Ultrastructural features
of the organ of Corti in normal and
acoustically stimulated animals. Ann
Otol Rhinol Laryngol 1962; 71:657-
677. - Spoendlin H. Primary structural
changes in the organ of Corti after
acoustic overstimulation. Acta Oto-
Iaryngol1971;71(2):166-176. - Brownell WE, Bader CR, Bertrand
D, de Ribaupierre Y. Evoked me
chanical responses of isolated co
chlear outer hair cells. Science 1985;
227(4683):194-196. - Zenner HP, Zimmermann U, Schmitt
U. Reversible contraction of isolated
mammalian cochlear hair cells. Hear
Res 1985; 18(2):127-133. - Zenner HP. Motile responses in outer
hair cells. Hear Res 1986; 22:83-90. - Zenner HP, Zimmermann U, GitterAH.
Fast motility of isolated mammalian
auditory sensory cells. Biochem Bio-
phys Res Commun 1987; 149(1 ):304-
308. - Zheng J, Shen W, He DZ, Long KB,
Madison LD, Dallos P. Prestin is the
motor protein of cochlear outer hair
cells. Nature 2000; 405(6783):149-
155. - Preyer S, Gummer AW. Nonlinear-
ity of mechanoelectrical transduction53 63of outer hair cells as the source of nonlinear basilar-membrane motion and loudness recruitment. Audiol Neurootol 1996; 1(1 ):3-11. - Lehnhardt E. Klinik der Innenohrschw-
erhorigkeiten. Arch Otorhinolaryngol
1984; Suppl. 1:58-218. - Le Page EL, Johnstone BM. Nonlinear
mechanical behaviour of the basilar
membrane in the basal turn of the
guinea pig cochlea. Hear Res 1980;
2(3-4):183-189. - Geisler CD. The responses of mod
els of ,,high-spontaneous” auditory-
nerve fibers in a damaged cochlea
to speech syllables in noise. J Acoust
Soc Am 1989; 86(6):2192-2205. - Leysieffer H, Baumann JW, Muller
G, Zenner HP. Ein implantierbarer
piezoelektrischer Horgeratewandler
fur Innenohrschwerhorige, Teil II:
Klinisches Implantat. HNO 1997;
45(10):801-815. - Roberto M, Hamernik RP, Turrentine
GA. Damage of the auditory system
associated with acute blast trauma.
Ann Otol Rhinol Laryngol Suppl 1989;
140:23-34. - Wang Y, Hirose K, Liberman MC. Dy
namics of noise-induced cellular injury
and repair in the mouse cochlea. J As-
soc Res Otolaryngol 2002; 3(3):248-
268. - Nordmann AS, Bohne BA, Harding
GW. Histopathological differences
between temporary and permanent
threshold shift. Hear Res 2000; 139(1-
2): 13-30. - Tilney LG, Saunders JC, Egelman
E, DeRosier DJ. Changes in the or-
ganization of actin filaments
in the stereocilia of noise-damaged lizard cochleae. Hear Res 1982; 7(2): 181-197.
- Liberman MC, Dodds LW. Single-neu
ron labeling and chronic cochlear pa
thology. II. Stereocilia damage and
alterations of spontaneous discharge
rates. Hear Res 1984; 16(1):43-53. - Choi DW. Excitotoxic cell death. J
Neurobiol 1992; 23(9):1261-1276. - Gutteridge JM, Halliwell B. Free radi
cals and antioxidants in the year 2000.
A historical look to the future. Ann N Y
Acad Sci 2000; 899:136-147. - Mattson MR Excitotoxic and excito-
protective mechanisms: abundant tar
gets for the prevention and treatment
of neurodegenerative disorders. Neu-
romolecular Med 2003; 3(2):65-94. - Kopke R, Allen KA, Henderson D, Hof-
fer M, Frenz D, Van de WT. A radi
cal demise. Toxins and trauma share
common pathways in hair cell death.
Ann N Y Acad Sci 1999; 884:171-
191. - Duncan RK, Saunders JC. Stereo-
cilium injury mediates hair bundle
stiffness loss and recovery follow
ing intense water-jet stimulation. J
Comp Physiol [A] 2000; 186(11 ):1095-
1106. - Saunders JC, Schneider ME, DearSP.
The structure and function of actin in
hair cells. J Acoust Soc Am 1985; 78(1
Pt2):299-311. - Adler HJ, Kenealy JF, DeDio RM,
Saunders JC. Threshold shift, hair
cell loss, and hair bundle stiffness fol
lowing exposure to 120 and 125 dB
pure tones in the neonatal chick. Acta
Otolaryngol 1992; 112(3):444-454.
- Hu BH, Henderson D, NicoteraTM.F-
actin cleavage in apoptotic outer hair
cells in chinchilla cochleas exposed to
intense noise. Hear Res 2002; 172(1-
2):1-9. - Schneider ME, Belyantseva IA, Aze-
vedo RB, Kachar B. Rapid renewal of
auditory hair bundles. Nature 2002;
418(6900):837-838. - Evans P, Halliwell B. Free radicals
and hearing. Cause, consequence,
and criteria. Ann N Y Acad Sci 1999;
884:19-40. - Miller JM, Schacht J, Altschuler R.
Prevention of noise-induced hear
ing loss. In: Henderson D, Prasher
D, Kopke R., Hamernik RP, editors.
Noise induced hearing loss: basic
mechanisms, prevention and control.
London: NRN publications, 2001:215-
230. - Ohlemiller KK, Wright JS, Dugan LL.
Early elevation of cochlear reactive
oxygen species following noise expo
sure. Audiol Neurootol 1999; 4(5):229-
236. - Yamane H, Nakai Y, Takayama M, Igu-
chi H, NakagawaT, Kojima A. Appear
ance of free radicals in the guinea pig
inner ear after noise-induced acous
tic trauma. Eur Arch Otorhinolaryngol
1995;252(8):504-508. - Yamasoba T, Harris C, Shoji F, Lee
RJ, Nuttall AL, Miller JM. Influence of
intense sound exposure on glutathi-
one synthesis in the cochlea. Brain
Res 1998; 804(1 ):72-78.
- Pourbakht A, Yamasoba T. Ebselen
attenuates cochlear damage caused
by acoustic trauma. Hear Res 2003;
181(1-2):100-108. - Hight NG, McFadden SL, Henderson
D, Burkard RF, Nicotera T. Noise-in
duced hearing loss in chinchillas pre-
treated with glutathione monoethyles-
ter and R-PIA. Hear Res 2003; 179(1 –
2):21-32. - Hu BH, Zheng XY, McFadden SL,
Kopke RD, Henderson D. R-phenyl-
isopropyladenosine attenuates noise-
induced hearing loss in the chinchilla.
Hear Res 1997; 113(1-2):198-206. - Kopke RD, Weisskopf PA, Boone JL,
Jackson RL, Wester DC, Hoffer ME,
Lambert DC, Charon CC, Ding DL,
McBride D. Reduction of noise-in
duced hearing loss using L-NAC and
salicylate in the chinchilla. Hear Res
2000;149(1-2):138-146. - Kopke RD, Coleman JK, Liu J, Camp
bell KC, Riffenburgh RH. Candidate’s
thesis: enhancing intrinsic cochlear
stress defenses to reduce noise-in
duced hearing loss. Laryngoscope
2002;112(9):1515-1532. - Yamasoba T, Nuttall AL, Harris C, Ra
phael Y, Miller JM. Role of glutathione
in protection against noise-induced
hearing loss. Brain Res 1998; 784(1-
2):82-90. - Yamasoba T, Schacht J, Shoji F, Miller
JM. Attenuation of cochlear damage
from noise trauma by an iron chela-
tor, a free radical scavenger and glial
cell line-derived neurotrophic factor
in vivo. Brain Res 1999; 815(2):317-
325.Ohlemiller KK, McFadden SL, Ding
DL, Flood DG, Reaume AG, Hoffman
EK, Scott RW, Wright JS, Putcha GV,
Salvi RJ. Targeted deletion of the cy-
tosolic Cu/Zn-superoxide dismutase
gene (Sod1) increases susceptibility
to noise-induced hearing loss. Audiol
Neurootol 1999; 4(5):237-246. - Ohlemiller KK, McFadden SL, Ding
DL, Lear PM, Ho YS. Targeted muta
tion of the gene for cellular glutathione
peroxidase (Gpx1) increases noise-
induced hearing loss in mice. J Assoc
Res Otolaryngol 2000; 1(3):243-254. - Halliwell B, Gutteridge JM. Role of
free radicals and catalytic metal ions
in human disease: an overview. Meth
ods Enzymol 1990; 186:1-85. - Fessenden JD, Schacht J. The nitric
oxide/cyclic GMP pathway: a potential
major regulator of cochlear physiology.
Hear Res 1998; 118(1-2):168-176. - Popa R, Anniko M, Takumida M, Ar
nold W. Localization of nitric oxide syn-
thase isoforms in the human cochlea.
Acta Otolaryngol 2001; 121(4):454-
459. - Shi X, Ren T, Nuttall AL. The electro
chemical and fluorescence detection
of nitric oxide in the cochlea and its
increase following loud sound. Hear
Res 2002; 164(1 -2):49-58. - Sies H, Sharov VS, Klotz LO, Briviba
K. Glutathione peroxidase protects
against peroxynitrite-mediated oxida
tions. A new function for selenopro-
teins as peroxynitrite reductase. J Biol
Chem 1997; 272(44):27812-27817. - Ehrenberger K, Felix D. Receptor
pharmacological models for inner ear
therapies with emphasis on glutamate
receptors: a survey. Acta Otolaryngol
1995;115(2):236-240.
- Puel JL, Ruel J, Gervais dC, Pujol
R. Excitotoxicity and repair of co
chlear synapses after noise-trauma
induced hearing loss. Neuroreport
1998; 9(9):2109-2114. - Ehrenberger K, Felix D. Glutamate
receptors in afferent cochlear neuro-
transmission in guinea pigs. Hear Res
1991; 52(1 ):73-80. - Eybalin M. Neurotransmitters and
neuromodulators of the mammalian
cochlea. Physiol Rev 1993; 73(2):309-
373. - Ruel J, Chen C, Pujol R, Bobbin RP,
Puel JL. AMPA-preferring glutamate
receptors in cochlear physiology of
adult guinea-pig. J Physiol 1999; 518
( Pt 3):667-680. - Ruel J, Bobbin RP, Vidal D, Pujol R,
Puel JL.The selective AMPA receptor
antagonist GYKI 53784 blocks action
potential generation and excitotoxicity
in the guinea pig cochlea. Neurophar-
macology 2000; 39(11 ):1959-1973. - Spoendlin H. The innervation of the
organ of Corti. J Laryngol Otol 1967;
81 (7):717-738. - Spoendlin H. Anatomy of cochlear
innervation. Am J Otolaryngol 1985;
6(6):453-467. - Puel JL. Chemical synaptic transmis
sion in the cochlea. Prog Neurobiol
1995;47(6):449-476. - Oestreicher E, Arnold W, Ehren
berger K, Felix D. New approaches
for inner ear therapy with glutamate
antagonists. Acta Otolaryngol 1999;
119(2):174-178.
- Matsubara A, Laake JH, Davanger S,
Usami S, Ottersen OP. Organization
of AMPA receptor subunits at a glu
tamate synapse: a quantitative immu-
nogold analysis of hair cell synapses
in the rat organ of Corti. J Neurosci
1996; 16(14):4457-4467. - Niedzielski AS, Safieddine S, Wen-
thold RJ. Molecular analysis of excit
atory amino acid receptor expression
in the cochlea. Audiol Neurootol 1997;
2(1-2):79-91. - Ryan AF, Brumm D, Kraft M. Occur
rence and distribution of non-NMDA
glutamate receptor mRNAs in the co
chlea. Neuroreport 1991; 2(11):643-
646. - Safieddine S, Eybalin M. Triple Immu-
nofluorescence Evidence for the Co
existence of Acetylcholine, Enkepha-
lins and Calcitonin Gene-related Pep-
tide Within Efferent (Olivocochlear)
Neurons of Rats and Guinea-pigs. Eur
J Neurosci 1992;4(10):981-992. - Usami S, Matsubara A, Fujita S,
Shinkawa H, Hayashi M. NMDA (NM-
DAR1) and AMPA-type (GluR2/3)
receptor subunits are expressed
in the inner ear. Neuroreport 1995;
6(8):1161-1164. - Choi DW. Excitotoxic cell death. J
Neurobiol 1992; 23(9):1261 -1276. - Puel JL, Ruel J, Gervais dC, Pujol
R. Excitotoxicity and repair of co
chlear synapses after noise-trauma
induced hearing loss. Neuroreport
1998; 9(9):2109-2114.
- Dudel J. Erregungsubertragung von
Zelle zu Zelle. In: Schmidt RF, Tews
G, editors. Physiologie des Menschen.
Heidelberg: Springer-Verlag, 1997:
43-66. - Choi DW, Rothman SM. The role of
glutamate neurotoxicity in hypoxic-
ischemic neuronal death. Annu Rev
Neurosci 1990; 13:171-182. - Hu BH.GuoW, Wang PY, Henderson
D, Jiang SC. Intense noise-induced
apoptosis in hair cells of guinea pig
cochleae. Acta Otolaryngol 2000;
120(1):19-24. - Nicotera TM, Hu BH, Henderson D.
The Caspase Pathway in Noise-In
duced Apoptosis of the Chinchilla
Cochlea. J Assoc Res Otolaryngol
2003. - Majno G, Joris I. Apoptosis, oncosis,
and necrosis. An overview of cell
death. Am J Pathol 1995; 146(1):3-
15. - Reed JC. Mechanisms of apopto
sis. Am J Pathol 2000; 157(5):1415-
1430. - Ashe PC, Berry MD. Apoptotic sig
naling cascades. Prog Neuropsy-
chopharmacol Biol Psychiatry 2003;
27(2): 199-214. - Chen M, Wang J. Initiator caspases in
apoptosis signaling pathways. Apop
tosis 2002; 7(4):313-319. - Cande C, Cecconi F, Dessen P, Kro-
emer G. Apoptosis-inducing factor
(AIF): key to the conserved caspase-
independent pathways of cell death?.
J Cell Sci 2002; 115(Pt 24):4727-
4734. - Hu BH, Henderson D, Nicotera TM.
Involvement of apoptosis in progres
sion of cochlear lesion following expo
sure to intense noise. Hear Res 2002;
166(1-2):62-71. - Davis RJ. Signal transduction by the
JNK group of MAP kinases. Cell 2000;
103(2):239-252. - Pirvola U, Xing-Qun L, Virkkala J,
Saarma M, Murakata C, Camoratto
AM, Walton KM, Ylikoski J. Rescue
of hearing, auditory hair cells, and
neurons by CEP-1347/KT7515, an
inhibitor of c-Jun N-terminal kinase
activation. J Neurosci 2000; 20(1 ):43-
50. - Cody AR, Robertson D. Variability of
noise-induced damage in the guinea
pig cochlea: electrophysiological and
morphological correlates after strictly
controlled exposures. Hear Res 1983;
9(1):55-70. - Henderson D, Subramaniam M,
Boettcher FA. Individual susceptibil
ity to noise-induced hearing loss: an
old topic revisited. Ear Hear 1993;
14(3): 152-168. - Ward WD. The concept of susceptibil
ity to hearing loss. J Occup Med 1965;
7(12):595-607. - ChonKM,RohHJ,GohEK,WangSG.
Noise Induced Hearing Loss and the
Individual Susceptibility to the Noise.
Int Tinnitus J 1996; 2:73-82. - Jerger J, Carhart R. Temporary
threshold shift as an index of noise
susceptibility. J Acoust Soc Am 1956;
28:611-613. - Plinkert PK, Hemmert W, Wagner W,
Just K, Zenner HP. Monitoring noise - susceptibility: sensitivity of otoacous-tic emissions and subjective audiome-try. Br J Audiol 1999; 33(6):367-382.
- Puel JL, Rebillard G. Effect of contra-
lateral sound stimulation on the dis
tortion product 2F1-F2: evidence that
the medial efferent system is involved.
J Acoust Soc Am 1990; 87(4): 1630-
1635. - Guinan JJ, Backus BC, Lilaonitkul W,
Aharonson V. Medial Olivocochlear Ef
ferent Reflex in Humans: Otoacoustic
Emission (OAE) Measurement Issues
and the Advantages of Stimulus Fre
quency OAEs. J Assoc Res Otolaryn-
gol 2003. - Maison SF, Liberman MC. Predicting
vulnerability to acoustic injury with a
noninvasive assay of olivocochlear
reflex strength. J Neurosci 2000;
20(12):4701-4707. - Venter JC, Adams MD, Myers EW, et
al. The sequence of the human ge
nome. Science 2001; 291 (5507): 1304-
1351. - Haack B, Pfister M, Blin N, Kupka S.
Genes involved in hearing impairment.
Curr Genomics 2003; 4:379-415. - Davis RR, Cheever ML, Krieg EF,
Erway LC. Quantitative measure of
genetic differences in susceptibility
to noise-induced hearing loss in two
strains of mice. Hear Res 1999; 134(1 –
2):9-15. - Davis RR, Newlander JK, Ling X, Cor-
topassi GA, Krieg EF, Erway LC. Ge
netic basis for susceptibility to noise-
induced hearing loss in mice. Hear
Res 2001 ;155(1 -2):82-90.
- Erway LC, Shiau YW, Davis RR, Krieg
EF. Genetics of age-related hearing
loss in mice. III. Susceptibility of in
bred and F1 hybrid strains to noise-
induced hearing loss. Hear Res 1996;
93(1-2):181-187. - Yoshida N, Hequembourg SJ, Aten-
cio CA, Rosowski JJ, Liberman MC.
Acoustic injury in mice: 129/SvEv is
exceptionally resistant to noise-in
duced hearing loss. Hear Res 2000;
141(1-2):97-106. - Davis RR, Kozel P, Erway LC. Genetic
influences in individual susceptibility
to noise: a review. Noise Health 2003;
5(20): 19-28. - Moller AR. Auditory neurophysiology.
J Clin Neurophysiol 1994; 11(3):284-
308. - Zakrisson JE, Borg E. Stapedius re
flex and auditory fatigue. Audiology
1974;13(3):231-235. - Warr WB, Guinan JJ, Jr.Efferent
innervation of the organ of corti: two
separate systems. Brain Res 1979;
173(1 ):152-155.
- Warr WB, Boche JB, Neely ST. Effer
ent innervation of the inner hair cell
region: origins and terminations of two
lateral olivocochlear systems. Hear
Res 1997; 108(1-2):89-111. - Oestreicher E, Arnold W, Ehrenberger
K, Felix D. Dopamine regulates the
glutamatergic inner hair cell activity
in guinea pigs. Hear Res 1997; 107(1 –
2):46-52. - Ruel J, Nouvian R, Gervais dC, Pu
jol R, Eybalin M, Puel JL. Dopamine
inhibition of auditory nerve activity in
the adult mammalian cochlea.
Eur J Neurosci 2001; 14(6):977-986.
- Fuchs PA. The synaptic physiology of
cochlear hair cells. Audiol Neurootol
2002; 7:40-44. - Plinkert PK, Gitter AH, Mohler H, Ze
nner HP. Structure, pharmacology
and function of GABA-A receptors
in cochlear outer hair cells. Eur Arch
Otorhinolaryngol 1993; 250(6):351-
357. - Plinkert PK, Zenner HP, Heilbronn
E. A nicotinic acetylcholine receptor-
like alpha-bungarotoxin-binding site
on outer hair cells. Hear Res 1991;
53(1): 123-130. - Elgoyhen AB, Johnson DS, Boulter
J, Vetter DE, Heinemann S. Alpha
9: an acetylcholine receptor with
novel pharmacological properties
expressed in rat cochlear hair cells.
Cell 1994;79(4):705-715. - Dallos P, He DZ, Lin X, Sziklai I, Mehta
S, Evans BN. Acetylcholine, outer hair
cell electromotility, and the cochlear
amplifier. J Neurosci 1997; 17(6):2212-
2226. - Oliver D, Klocker N, Schuck J, Bauk-
rowitz T, Ruppersberg JP, Fakler B.
Gating of Ca2+-activated K+ chan
nels controls fast inhibitory synaptic
transmission at auditory outer hair
cells. Neuron 2000; 26(3):595-601. - Pfaltz R. Einfluss schallgereizter ef-
ferenter Horbahnanteile auf den de-
afferentierten Nucleus cochlearis
(Meerschweinchen). Pflugers Arch
ges Physiol 1962; 274:533-552. - Pfaltz R. Nachweis der akustischen
Efferenzen und ihre Wirkung auf die
schallaufnehmende Peripherie (Nu
cleus cochlearis, cochlea).
Arch Ohr Nas Kehlk Heilk 1962; 180:730.
- Cody AR, Johnstone BM. Temporary
threshold shift modified by binaural
acoustic stimulation. Hear Res 1982;
6(2):199-205. - Maffi CL, Aitkin LM. Differential neural
projections to regions of the inferior
colliculus of the cat responsive to high
frequency sounds. Hear Res 1987;
26(2):211-219. - Pfaltz R, Pirsig W, Sadanaga M. Post-
synaptische, auditorische, gekreuzte,
efferente Hemmung im Nucleus ven-
tralis und ihre Blockade durch Strych-
ninnitrat (Meerschweinchen). Arch
klin exp Ohr Nas Kehlk Heilk 1968;
190:60. - Rajan R, Johnstone BM. Residual ef
fects in monaural temporary threshold
shifts to pure tones. Hear Res 1983;
12(2):185-197. - Vosteen KH. Zur pathologischen
Anatomie efferenter Nervenfasern in
der Schnecke. Arch Ohr Nas u Kehlk
Heilk 1968; 181:268-278. - Ryan AF, Keithley EM, Wang ZX,
Schwartz IR. Collaterals from lateral
and medial olivocochlear efferent
neurons innervate different regions
of the cochlear nucleus and adjacent
brainstem. J Comp Neurol 1990;
300(4):572-582. - Liberman MC. The olivocochlear ef
ferent bundle and susceptibility of the
inner ear to acoustic injury. J Neuro-
physiol 1991; 65(1 ):123-132. - el Barbary A, Altschuler RA, Schacht
J. Glutathione S-transferases in the organ of
Corti of the rat: enzymatic activity, subunit
composition and im-munohistochemical localization.
Hear Res1993;71(1-2):80-90.
- Nam YJ, Stover T, Hartman SS,
Altschuler RA. Upregulation of glial
cell line-derived neurotrophic factor
(GDNF) in the rat cochlea following
noise. Hear Res 2000; 146(1-2):1-6. - Bibel M, BardeYA. Neurotrophins: key
regulators of cell fate and cell shape
in the vertebrate nervous system.
Genes Dev 2000; 14(23):2919-2937. - Keithley EM, Ma CL, Ryan AF, Louis
JC, Magal E. GDNF protects the co
chlea against noise damage. Neuro-
report 1998; 9(10):2183-2187. - Fritzsch B, Pirvola U, Ylikoski J. Mak
ing and breaking the innervation of
the ear: neurotrophic support dur
ing ear development and its clinical
implications. Cell Tissue Res 1999;
295(3):369-382. - Staecker H, Kopke R, Malgrange B,
Lefebvre P, Van De Water TR. NT-3
and/or BDNF therapy prevents loss
of auditory neurons following loss of
hair cells. Neuroreport1996;7(4):889-
894. - Oestreicher E, Knipper M, Arnold A,
Zenner HP, Felix D. Neurotrophin 3
potentiates glutamatergic responses
of IHC afferents in the cochlea in vivo.
Eur J Neurosci 2000; 12(5):1584-
1590. - Schimmang T, Tan J, Muller M, Zim-
mermann U, Rohbock K, Kopschall I,
LimbergerA, MinichielloL, Knipper M.
Lack of Bdnf and TrkB signalling in the
postnatal cochlea leads to a spatial
reshaping of innervation along the
tonotopic axis and hearing loss. De
velopment 2003; 130(19):4741-4750.
- Pickles JO, Chir B. Roles of fibroblast
growth factors in the inner ear. Audiol
Neurootol 2002; 7(1 ):36-39. - Zine A, de Ribaupierre F. Tissue-spe
cific levels and cellular distribution of
epidermal growth factor receptors
within control and neomycin-dam-
aged neonatal rat Organ of Corti. J
Neurobiol 1999; 38(3):313-322. - Michel O, Hess A, Bloch W, Schmidt
A, Stennert E, Addicks K. Immuno-
histochemical detection of vascular
endothelial growth factor (VEGF) and
VEGF receptors Flt-1 and KDR/Flk-1
in the cochlea of guinea pigs. Hear
Res 2001; 155(1 -2): 175-180. - Parsell DA, Lindquist S. The function
of heat-shock proteins in stress toler
ance: degradation and reactivation of
damaged proteins. Annu Rev Genet
1993; 27:437-496. - Neely JG, Thompson AM, Gower
DJ. Detection and localization of
heat shock protein 70 in the normal
guinea pig cochlea. Hear Res 1991;
52(2):403-406. - Dechesne CJ, Kim HN, Nowak TS,
Jr., Wenthold RJ. Expression of heat
shock protein, HSP72, in the guinea
pig and rat cochlea after hyperther-
mia: immunochemical and in situ hy
bridization analysis. Hear Res 1992;
59(2): 195-204. - Yoshida N, Kristiansen A, Liberman
MC. Heat stress and protection from
permanent acoustic injury in mice. J
Neurosci 1999; 19(22):10116-10124.
- Plontke SK, Lifshitz J, Saunders JC.
Distribution of rate-intensity function
types in chick cochlear nerve after
exposure to intense sound. Brain Res
1999; 842(1 ):262-274. - Lim HH, Jenkins OH, Myers MW,
Miller JM, Altschuler RA. Detection
of HSP 72 synthesis after acoustic
overstimulation in rat cochlea. Hear
Res 1993; 69(1-2):146-150. - Niu X, Shao R, Canlon B. Suppression
of apoptosis occurs in the cochlea
by sound conditioning. Neuroreport
2003; 14(7):1025-1029. - Lomax Ml, GongTW.ChoY, Huang L,
Oh SH, Adler HJ, Raphael Y, Altschul
er RA. Differential Gene Expression
Following Noise Trauma in Birds
and Mammals. Noise Health 2001;
- O’Donovan KJ, Tourtellotte WG, Mill-
brandt J, Baraban JM. The EGR fam
ily of transcription-regulatory factors:
progress at the interface of molecular
and systems neuroscience. Trends
Neurosci 1999; 22(4):167-173. - Taggart RT, McFadden SL, Ding DL,
Henderson D, Jin X, Sun W, Salvi R.
Gene Expression Changes in Chin
chilla Cochlea from Noise-Induced
Temporary Threshold Shift. Noise
Health 2001; 3(11):1 -18. - Jacono AA, Hu B, Kopke RD, Hender
son D, Van De Water TR, Steinman
HM. Changes in cochlear antioxidant
enzyme activity after sound condition
ing and noise exposure in the chinchil
la. Hear Res 1998; 117(1 -2):31 -38. - Sobkowicz HM, August BK, Slapnick
SM. Epithelial repair following me-chanical injury of the developing organ of Corti in culture: an electron microscopic and autoradiographic study. Exp Neurol 1992; 115(1):44-49. - Puel JL, Saffiedine S, Gervais dC, Ey-
balin M, Pujol R. Synaptic regenera
tion and functional recovery after exci-
totoxic injury in the guinea pig cochlea.
C R Acad Sci III 1995; 318(1):67-75. - d’Aldin CG, Ruel J, Assie R, Pujol R,
Puel JL. Implication of NMDA type
glutamate receptors in neural regen
eration and neoformation of synapses
after excitotoxic injury in the guinea
pig cochlea. Int J Dev Neurosci 1997;
15(4-5):619-629. - Puel JL, Ruel J, Guitton M, Wang J,
Pujol R. The inner hair cell synaptic
complex: physiology, pharmacology
and new therapeutic strategies. Au-
diol Neurootol 2002; 7(1):49-54. - Lowenheim H, Furness DN, Kil J, Zinn
C, Gultig K, Fero ML, Frost D, Gummer
AW, Roberts JM, Rubel EW, Hackney
CM, Zenner HP. Gene disruption of
p27(Kip1) allows cell proliferation
in the postnatal and adult organ of
corti. Proc Natl Acad Sci U S A 1999;
96(7):4084-4088. - Lowenheim H. Regenerative medi
cine for diseases of the head and
neck: principles of in vivo regenera
tion. DNA Cell Biol. 2003, 22(9):571-
92. - Corwin JT, Cotanche DA. Regen
eration of sensory hair cells after
acoustic trauma. Science 1988;
240(4860):1772-1774. - Cotanche DA. Regeneration of hair
cell stereociliary bundles in the chick
cochlea following severe acoustic trauma.
Hear Res 1987; 30(2-3):181-195.
- Cotanche DA. Structural recovery
from sound and aminoglycoside
damage in the avian cochlea. Audiol
Neurootol 1999; 4(6):271-285. - Ryals BM, Rubel EW. Hair cell re
generation after acoustic trauma in
adult Coturnix quail. Science 1988;
240(4860):1774-1776. - Saunders JC, Doan DE, Poje CP,
Fisher KA. Cochlear nerve activity
after intense sound exposure in neo
natal chicks. J Neurophysiol 1996;
76(2):770-787. - Smolders JW. Functional recovery in
the avian ear after hair cell regenera
tion. Audiol Neurootol 1999;4(6):286-
302. - Reng D, Muller M, Smolders JW.
Functional recovery of hearing follow
ing ampa-induced reversible disrup
tion of hair cell afferent synapses in
the avian inner ear. Audiol Neurootol
2001;6(2):66-78. - Liang P, Pardee AB. Differential dis
play of eukaryotic messenger RNA
by means of the polymerase chain re
action. Science 1992; 257(5072):967-
971. - Liang P, Pardee AB. Differential dis
play. A general protocol. Mol Biotech-
nol 1998; 10(3):261-267. - Diatchenko L, Lukyanov S, Lau YF,
Siebert PD. Suppression subtractive
hybridization: a versatile method for
identifying differentially expressed
genes. Methods Enzymol 1999;
303:349-380.
- Robertson NG, Lu L, Heller S, Mer
chant SN, Eavey RD, McKenna M,
Nadol JB, Jr., Miyamoto RT, Linthi-
cum FH, Jr., Lubianca Neto JF, Hud-
speth AJ, Seidman CE, Morton CC,
Seidman JG. Mutations in a novel
cochlear gene cause DFNA9, a hu
man nonsyndromic deafness with
vestibular dysfunction. Nat Genet
1998;20(3):299-303. - Weichbold V, Zorowka P. Der Einfluss
der Information uber Gehorgefahr-
dung durch laute Musik. HNO 2002;
50(6):560-564. - Bundesarztekammer. Gehorschaden
durch Larmbelastung in der Freizeit,
Stellungnahme des wissenschaftli-
chen Beirates. Dt Arztebl 1999; 96(16):
C-760-C-763. - Attias J, Bresloff I, Haupt H, Scheibe F,
Ising H. Preventing noise induced oto-
acoustic emission loss by increasing
magnesium (Mg2+) intake in guinea-
pigs. J Basic Clin Physiol Pharmacol
2003; 14(2): 119-136. - Joachims Z, Babisch W, Ising H, Gun-
ther T, Handrock M. Dependence of
noise-induced hearing loss upon peri-
lymph magnesium concentration. J
AcoustSocAm 1983; 74(1):104-108. - Haupt H, Scheibe F. Preventive mag
nesium supplement protects the inner
ear against noise-induced impairment
of blood flow and oxygenation in the
guinea pig. Magnes Res 2002; 15(1-
2): 17-25. - Scheibe F, Haupt H, Ising H. Preven
tive effect of magnesium supplement
on noise-induced hearing loss in the
guinea pig. Eur Arch Otorhinolaryngol
2000;257(1):10-16.
- Attias J, Weisz G, Almog S, Shahar
A, Wiener M, Joachims Z, Netzer
A, Ising H, Rebentisch E, Guenther
T. Oral magnesium intake reduces
permanent hearing loss induced by
noise exposure. Am J Otolaryngol
1994; 15(1 ):26-32. - Gil-Loyzaga P, Fernandez-Mateos
P, Vicente-Torres MA, Remezal M,
Cousillas H, Arce A, Esquifino A. Ef
fects of noise stimulation on cochlear
dopamine metabolism. Brain Res
1993;623(1):177-180. - d’Aldin C, Puel JL, Leducq R, Cram-
bes O, Eybalin M, Pujol R. Effects of
a dopaminergic agonist in the guinea
pig cochlea. Hear Res 1995; 90(1-
2):202-211. - Ehrenberger K. Clinical experience
with caroverine in inner ear diseases.
Adv Otorhinolaryngol 2002; 59:156-
162. - Oestreicher E, Arnold W, Felix D. Neu-
rotransmission of the cochlear inner
hair cell synapse-implications for in
ner ear therapy. Adv Otorhinolaryngol
2002; 59:131-139. - Oestreicher E, Ehrenberger K, Felix
D. Different action of memantine and
caroverine on glutamatergic transmis
sion in the mammalian cochlea. Adv
Otorhinolaryngol 2002; 59:18-25. - Udilova N, Kozlov AV, Bieberschulte
W, Frei K, Ehrenberger K, Nohl H.The
antioxidant activity of caroverine. Bio-
chem Pharmacol 2003; 65(1):59-65. - Gilgun-Sherki Y, Rosenbaum Z,
Melamed E, Offen D. Antioxidant their apply in acute central nervous system injury: current state. Pharmacol Rev 2002; 54(2):271 -284. - Reed JC. Apoptosis-based therapies.
Nat Rev Drug Discov 2002; 1 (2):111 –
121. - Manning AM, Davis RJ.Targeting JNK
for therapeutic benefit: from junk to
gold? Nat Rev Drug Discov 2003;
2(7):554-565. - Wang J, Van De Water TR, Bonny C,
de Ribaupierre F, Puel JL, Zine A. A
peptide inhibitor of c-Jun N-terminal
kinase protects against both amino-
glycoside and acoustic trauma-in
duced auditory hair cell death and
hearing loss28. J Neurosci 2003;
23(24):8596-8607.
- Miller JD, Watson CS, Covell WP.
Deafening effects of noise on the cat.
Acta Otolaryngol Suppl 1963; 176:1-
91. - Niu X, Canlon B. Protective mecha
nisms of sound conditioning. Adv Oto-
rhinolaryngol 2002; 59:96-105. - Boettcher FA, Schmiedt RA. Distor
tion-product otoacoustic emissions in
Mongolian gerbils with resistance to
noise-induced hearing loss. J Acoust
Soc Am 1995; 98(6):3215-3222. - Ryan AF, Bennett TM, Woolf NK,
Axelsson A. Protection from noise-in
duced hearing loss by prior exposure
to a nontraumatic stimulus: role of the
middle ear muscles. Hear Res 1994;
72(1-2):23-28. - White DR, Boettcher FA, Miles LR,
Gratton MA. Effectiveness of intermit
tent and continuous acoustic stimula-
tion in preventing noise-induced hearing and hair cell loss. J Acoust Soc Am 1998; 103(3):1566-1572.
- Pukkila M, Zhai S, Virkkala J, Pirvola
U, Ylikoski J. The ,,toughening” phe
nomenon in rat’s auditory organ. Acta
Otolaryngol Suppl 1997; 529:59-62. - Canlon B, Borg E, Flock A. Protection
against noise trauma by pre-exposure
to a low level acoustic stimulus. Hear
Res 1988; 34(2):197-200. - Kujawa SG, Liberman MC. Condition
ing-related protection from acoustic
injury: effects of chronic deefferenta-
tion and sham surgery. J Neurophysiol
1997;78(6):3095-3106. - Miyakita T, Hellstrom PA, Frimanson
E, Axelsson A. Effect of low level
acoustic stimulation on temporary
threshold shift in young humans. Hear
Res 1992; 60(2):149-155. - Boettcher FA. Auditory brain-stem
response correlates of resistance to
noise-induced hearing loss in Mongo
lian gerbils. J Acoust Soc Am 1993;
94(6):3207-3214. - Clark WW, Bohne BA, Boettcher FA.
Effect of periodic rest on hearing loss
and cochlear damage following expo
sure to noise. J Acoust Soc Am 1987;
82(4):1253-1264. - Sinex DG, Clark WW, Bohne BA. Ef
fects of periodic rest on physiological
measures of auditory sensitivity fol
lowing exposure to noise. J Acoust
Soc Am 1987; 82(4):1265-1273. - Campo P, Subramaniam M, Hen
derson D. The effect of .condition
ing’ exposures on hearing loss from
traumatic exposure. Hear Res 1991;
55(2):195-200.
- Boettcher FA, Spongr VP, Salvi RJ.
Physiological and histological chang
es associated with the reduction in
threshold shift during interrupted
noise exposure. Hear Res 1992;
62(2):217-236. - Subramaniam M, Henderson D, Cam
po P, Spongr V. The effect of .condi
tioning’ on hearing loss from a high
frequency traumatic exposure. Hear
Res 1992; 58(1 ):57-62. - FowlerT, Canlon B, Dolan D, MillerJM.
The effect of noise trauma following
training exposures in the mouse. Hear
Res 1995; 88(1-2):1-13. - Yoshida N, Liberman MC. Sound con
ditioning reduces noise-induced per
manent threshold shift in mice. Hear
Res 2000; 148(1-2):213-219. - Henderson D, Subramaniam M, Papa-
zian M, Spongr VP. The role of middle
ear muscles in the development of
resistance to noise induced hearing
loss. Hear Res 1994; 74(1 -2):22-28. - Dagli S, Canlon B. Protection against
noise trauma by sound conditioning
in the guinea pig appears not to be
mediated by the middle ear muscles.
Neurosci Lett 1995; 194(1-2):57-60. - Zheng XY, Henderson D, McFadden
SL, Hu BH.The role of the cochlear ef
ferent system in acquired resistance
to noise-induced hearing loss. Hear
Res 1997; 104(1-2): 191-203. - YamasobaT, Dolan DF, Miller JM. Ac
quired resistance to acoustic trauma
by sound conditioning is primarily me
diated by changes restricted to the
cochlea, not by systemic responses.
Hear Res 1999; 127(1-2):31-40.
- Yamasoba T, Dolan DF. The medial
cochlear efferent system does not ap
pear to contribute to the development
of acquired resistance to acoustic
trauma. Hear Res 1998; 120(1 -2): 143-
151. - Jacono AA, Hu B, Kopke RD, Hender
son D, Van De Water TR, Steinman
HM. Changes in cochlear antioxidant
enzyme activity after sound condition
ing and noise exposure in the chinchil
la. Hear Res 1998; 117(1-2):31-38. - Patuzzi R. A four-state kinetic model
of the temporary threshold shift after
loud sound based on inactivation of
hair cell transduction channels. Hear
Res 1998; 125(1-2):39-70. - Patuzzi R. Exponential onset and re
covery of temporary threshold shift
after loud sound: evidence for long-
term inactivation of mechano-electri-
cal transduction channels. Hear Res
1998;125(1-2):17-38. - Lamm K, Arnold W. How useful is cor-
ticosteroid treatment in cochlear dis
orders? Otorhinolaryngol Nova 1999;
9:203-216. - NiedermeyerHP, Zahneisen G, Luppa
P, Busch R, Arnold W. Cortisol levels
in the human perilymph after intrave
nous administration of prednisolone.
Audiol Neurootol 2003; 8(6):316-321. - Bachmann G, Su J, Zumegen C, Wit-
tekindt C, Michel O. Permeabilitat der
runden Fenstermembran fur Pred-
nisolon-21-Hydrogensuccinat. HNO
2001;49(7):538-542. - Parnes LS, Sun AH, Freeman DJ.
Corticosteroid pharmacokinetics in
the inner ear fluids: an animal study
followed by clinical application. Laryn
goscope 1999; 109(7 Pt2):1-17. - Lefebvre PR Malgrange B, Lallemend
F, StaeckerH, MoonenG,Van De Wa
ter TR. Mechanisms of cell death in
the injured auditory system: otopro-
tective strategies. Audiol Neurootol
2002; 7(3): 165-170. - Joachims Z, NetzerA, IsingH, Reben-
tisch E, Attias J, Weisz G, GuntherT.
Oral magnesium supplementation as
prophylaxis for noise-induced hear
ing loss: results of a double blind field
study. Schriftenr Ver Wasser Boden
Lufthyg 1993; 88:503-516. - Haupt H, Scheibe F, Mazurek B.
Therapeutic efficacy of magnesium
in acoustic trauma in the guinea pig.
ORL J Otorhinolaryngol Relat Spec
2003; 65(3): 134-139. - Scheibe F, Haupt H, Mazurek B, Konig
O. Therapeutic effect of magnesium
on noise-induced hearing loss. Noise
Health 2001; 3(11):79-84. - Scheibe F, Haupt H, Ising H, Cherny L
Therapeutic effect of parenteral mag
nesium on noise-induced hearing loss
in the guinea pig. Magnes Res 2002;
15(1-2):27-36. - Rebillard G, Ruel J, Nouvian R, Saleh
H, Pujol R, Dehnes Y, Raymond J,
Puel JL, Devau G. Glutamate trans
porters in the guinea-pig cochlea:
partial mRNA sequences, cellular ex
pression and functional implications.
Eur J Neurosci 2003; 17(1):83-92.
- MoserT, Beutner D. Kinetics of exocy-
tosis and endocytosis at the cochlear
inner hair cell afferent synapse of the
mouse. Proc Natl Acad Sci U S A
2000; 97(2):883-888. - Platzer J, Engel J, Schrott-Fischer A,
Stephan K, Bova S, Chen H, Zheng H,
Striessnig J. Congenital deafness and
sinoatrial node dysfunction in mice
lacking class D L-type Ca2+ channels.
Cell 2000; 102(1 ):89-97. - Engel J, Michna M, Platzer J, Striess
nig J. Calcium channels in mouse
hair cells: function, properties and
pharmacology. Adv Otorhinolaryngol
2002; 59:35-41. - Springer JE, Kitzman PH. Neuropro-
tective Strategies involving the neuro-
trophins and their signaling pathways.
In: Mattson MP, editor. Neuroprotec-
tive Signal Transduction. New Jersey:
Humana Press, 1998:1-22. - Keithley EM, Ma CL, Ryan AF, Louis
JC, Magal E. GDNF protects the co
chlea against noise damage. Neuro-
report 1998; 9(10):2183-2187. - Avraham KB, Raphael Y. Prospects
for gene therapy in hearing loss. J
Basic Clin Physiol Pharmacol 2003;
14(2):77-83. - Lalwani AK, Jero J, Mhatre AN. Cur
rent issues in cochlear gene transfer.
Audiol Neurootol 2002; 7(3):146-151. - Staecker H, Li D, O’Malley BW, Jr.,
Van De Water TR. Gene expression
in the mammalian cochlea: a study of
multiple vector systems. Acta Otolar-
yngol2001; 121(2):157-163. - StoverT, Yagi M, RaphaelY. Cochlear
gene transfer: round window versus cochleostomy inoculation. Hear Res 1999; 136(1-2):124-130. - Lange G. [27 years experiences with
transtympanic aminoglycoside treat
ment of Meniere’s disease]. Laryngo-
rhinootologie 1995; 74(12):720-723. - Alzamil KS, Linthicum FH, Jr. Extrane
ous round window membranes and
plugs: possible effect on intratympan-
ic therapy. Ann Otol Rhinol Laryngol
2000; 109(1 ):30-32. - Plontke SK, Plinkert PK, Plinkert B,
Koitschev A, Zenner HP, Lowenheim
H.Transtympanic endoscopy for drug
delivery to the inner ear using a new
microendoscope. Adv Otorhinolaryn
gol 2002; 59:149-155. - Plontke SK, Wood AW, Salt AN. Anal
ysis of gentamicin kinetics in fluids
of the inner ear with round window
administration. Otol Neurotol 2002;
23(6):967-974. - Plontke SK, Salt AN. Quantitative
interpretation of corticosteroid phar-
makokinetics in innner ear fluids us
ing computer simulations. Hear Res
2003; 182:34-42 - Arriaga MA, Goldman S. Hearing re
sults of intratympanic steroid treat
ment of endolymphatic hydrops. La
ryngoscope 1998; 108(11 Pt1):1682-
1685. - Hoffer ME, Balough B, Henderson J,
DeCicco M, Wester D, O’Leary MJ,
Kopke R. Use of sustained release
vehicles in the treatment of Meniere’s
disease. Otolaryngol Clin North Am
1997; 30(6): 1159-1166. - Thomsen J, Charabi S, Tos M. Pre
liminary results of a new delivery sys-
tem for gentamicin to the inner ear
in patients with Meniere’s disease.
Eur Arch Otorhinolaryngol 2000; 257(7):362-365.
- Kopke RD, Hoffer ME, Wester D,
O’Leary MJ, Jackson RL. Targeted
topical steroid therapy in sudden sen-
sorineural hearing loss. Otol Neurotol
2001; 22(4):475-479. - Lehner R, Brugger H, Maassen MM,
Zenner HP. A totally implantable drug
delivery system for local therapy of
the middle and inner ear. Ear Nose
Throat J 1997; 76(8):567-570. - Praetorius M, Limberger A, Muller
M, Lehner R, Schick B, Zenner HP,
Plinkert P, Knipper M. A novel micro-
perfusion system for the long-term
local supply of drugs to the inner
ear: implantation and function in the
rat model. Audiol Neurootol 2001;
6(5):250-258. - Goycoolea MV. Clinical aspects of
round window membrane permeabil
ity under normal and pathological
conditions. Acta Otolaryngol 2001;
121(4):437-447. - Hoffer ME, Allen K, Kopke RD, Weiss-
kopf P, Gottshall K, Wester D. Trans
tympanic versus sustained-release
administration of gentamicin: kinetics,
morphology, and function. Laryngo
scope 2001; 111 (8):1343-1357. - Salt AN, Kellner C, Hale S. Contami
nation of perilymph samples from the
basal cochlear fluid with cerebrospi-
nal fluid. Hear.Res. in press. 2003.
Ref Type: Generic - Wienke A. The Bonn declaration re
garding the future of hearing aid man-
agement. 7. HNO 2002; 50(9):861-862.
- Zenner HP. Implantable hearing de
vices: an introduction. In: Jahnke K,
editor. Middle ear surgery – recent ad
vances and future directions. Stuttgart,
New York: Thieme, 2004:141-160. - Zenner HP. A Systematic Classifica
tion of Tinnitus Generator Mecha
nisms. Int Tinnitus J 1998; 4(2):109-
113. - Zenner HP. Systematics for mecha
nisms of tinnitus development. HNO
1998;46(8):699-704. - Jastreboff PJ. Phantom auditory per
ception (tinnitus): mechanisms of
generation and perception. Neurosci
Res1990;8(4):221-254. - Jastreboff PJ, Hazell JW. A neuro-
physiological approach to tinnitus:
clinical implications. Br J Audiol 1993;
27(1):7-17. - Zenner HP. Kognitive Tinnitusdesen-
sitivierung – evidenzbasierte und
leitliniengerechte Habituationsthera-
pie bei chronischerTinnitussensitivei-
rung. HNO 2003; 51(9):687-689. - Zenner HP, Zalaman I. Cognitive tin
nitus sensitization – behavioral and
neurophysiological aspects of tinnitus
centralization. Acta Otolaryngol. 2004,
124(4):436-439. - Birbaumer N, Schmidt RF. Wachen,
Aufmerksamkeit und Schlafen; Lernen
und Gedachtnis. In: Schmidt RF, Tews
G, editors. Physiologie des Menschen.
Heidelberg, New York: Springer, 1997:
141-166. - OvermierJB. Sensitization, condition
ing, and learning: can they help us
understand somatization and disabil
ity? Scand J Psychol 2002; 43(2): 105-112.
- DGHNO. Leitlinie Tinnitus. AWMF-
LeitlinReg 1998; 017/064. - Jastreboff PJ, Jastreboff MM. Tin
nitus retraining therapy for patients
with tinnitus and decreased sound
tolerance. Otolaryngol Clin North Am
2003; 36(2):321-336. - Wilson PH, Henry JL, Andersson
G, Hallam RS, Lindberg P. A critical
analysis of directive counselling as a
component of tinnitus retraining ther
apy. Br J Audiol 1998; 32(5):273-286. - Goebel G. Retraining therapy in tin
nitus. Paradigm change or old wine
in new bottles? HNO 1997; 45(9):664-
667. - von Wedel H, von Wedel UC. An as
sessment of tinnitus retraining therapy.
HNO 2000; 48(12):887-901. - BerryJA, Gold SL, Frederick EA, Gray
WC, Staecker H. Patient-based out
comes in patients with primary tin
nitus undergoing tinnitus retraining
therapy. Arch Otolaryngol Head Neck
Surg 2002; 128(10):1153-1157. - Delb W, D’Amelio R, Boisten CJ,
Plinkert PK. Evaluation of the tinnitus
retraining therapy as combined with
a cognitive behavioral group therapy.
HNO 2002; 50(11):997-1004. - Wang H, Jiang S, Yang W, Han D.Tin
nitus retraining therapy: a clinical con
trol study of 117 patients. Zhonghua Yi
Xue Za Zhi 2002; 82(21 ):1464-1467. - Kroner-Herwig B, Hebing G, Rijn-
Kalkmann U, Frenzel A, Schilkowsky
G, Esser G. The management ofchronic tinnitus-comparison of a cognitive-behavioural group training with yoga. J Psychosom Res 1995;
39(2):153-165.
- Wise K, Rief W, Goebel G. Meeting
the expectations of chronic tinnitus
patients: comparison of a structured
group therapy program for tinnitus
management with a problem-solv
ing group. J Psychosom Res 1998;
44(6):681-685. - Fechter L, Chen G, Rao D. Noise and
occupational exposures. In: Hender
son D, PrasherD, Kopke R., Hamernik
RP, editors. Noise induced hearing
loss: basic mechanisms, prevention
and control. London: NRN publica
tions, 2001: 305-318. - MorataTC, Engel T, Durao A, Costa
TR, Krieg EF, Dunn DE, Lozano MA.
Hearing loss from combined expo
sures among petroleum refinery work
ers. Scand Audiol 1997; 26(3):141-
149. - Sliwinska-Kowalska M, Zamyslows-
ka-Szmytke E, Szymczak W, Kotylo
P, Fiszer M, Wesolowski W, Pawlac-
zyk-Luszczynska M. Ototoxic effects
of occupational exposure to styrene
and co-exposure to styrene and noise.
J Occup Environ Med2003;45(1):15-
24. - Fearn RW. Serial audiometry in young
people exposed to loud amplified
pop music. J Sound Vibration 1981;
74:459-462. - Clark WW. Noise exposure from lei
sure activities: a review. J Acoust Soc
Am 1991; 90(1 ):175-181.
- Axelsson A, Jerson T, Lindgren F.
Noisy leisure time activities in teen
age boys. Am Ind Hyg Assoc J 1981;
42(3):229-233. - QuirkWS, Shivapuja BG, Schwimmer
CL, Seidman MD. Lipid peroxidation
inhibitor attenuates noise-induced
temporary threshold shifts. Hear Res
1994; 74(1-2):217-220. - Shoji F, Miller AL, Mitchell A, Ya-
masoba T, Altschuler RA, Miller JM.
Differential protective effects of neu-
rotrophins in the attenuation of noise-
induced hair cell loss. Hear Res 2000;
146(1 -2):134-142. - Duan M, Agerman K, Ernfors P, Can-
Ion B. Complementary roles of neuro-
trophin 3 and a N-methyl-D-aspartate
antagonist in the protection of noise
and aminoglycoside-induced ototox-
icity. Proc Natl Acad Sci U S A 2000;
97(13):7597-7602. - Wang J, Dib M, Lenoir M, Vago P,
Eybalin M, Hameg A, Pujol R, Puel
JL. Riluzole rescues cochlear sen
sory cells from acoustic trauma in
the guinea-pig. Neuroscience 2002;
111(3):635-648. - Chen Z, Ulfendahl M, Ruan R, Tan
L, Duan M. Acute treatment of noise
trauma with local caroverine applica
tion in the guinea pig. Acta Otolaryn
gol 2003; 123(8):905-909 - Ohinata Y, Miller JM, Schacht J.
Protection from noise-induced lipid
peroxidation and hair cell loss in the
cochlea. Brain Res 2003; 966(2):265-
273. - Wang J, Ding D, Shulman A, Stracher
A, Salvi RJ. Leupeptin protects sen-
sory hair cells from acoustic trauma.
Neuroreport 1999; 10(4):811-816.
- d’Aldin C, Cherny L, Devriere F, Dancer
A. Treatment of acoustic trauma. Ann
N Y Acad Sci 1999; 884:328-344. - Lamm K, Arnold W. Successful treat
ment of noise-induced cochlear isch
emia, hypoxia, and hearing loss. Ann
N Y Acad Sci 1999; 884:233-248. - Lamm K, Arnold W. The effect of blood
flow promoting drugs on cochlear
blood flow, perilymphatic pO(2) and
auditory function in the normal and
noise-damaged hypoxic and ischemic
guinea pig inner ear. Hear Res 2000;
141(1-2):199-219. - LomaxMI, GongTW.ChoY, Huang L,
Oh SH, Adler HJ, Raphael Y, Altschul-
er RA. Differential gene expression
following noise trauma in birds and
mammals. In: Henderson D, Prasher
D, Kopke R., Hamernik RP, editors.
Noise induced hearing loss: basic
mechanisms, prevention and control.
London: NRN publications, 2001:55-
71. - GongTW, Hegeman AD, Shin JJ, Adler
HJ, Raphael Y, Lomax Ml. Identifica
tion of genes expressed after noise
exposure in the chick basilar papilla.
Hear Res 1996; 96(1-2):20-32. - Gong TW, Huang L, Warner SJ, Lo
max Ml. Characterization of the hu
man UBE3B gene: structure, expres
sion, evolution, and alternative splic
ing small star, filled. Genomics 2003;
82(2):143-152. - Adler HJ, Winnicki RS, Gong TW, Lo
max Ml. A gene upregulated in the
acoustically damaged chick basilar
papilla encodes a novel WD40 repeat protein. Genomics 1999; 56(1 ):59-69.
- Gong TW, Shin JJ, Burmeister M, Lo
max Ml. Complete cDNAs for CDC42
from chicken cochlea and mouse
liver. Biochim Biophys Acta 1997;
1352(3):282-292. - Gong TW, Winnicki RS, Kohrman DC,
Lomax Ml. A novel mouse kinesin
of the UNC-104/KIF1 subfamily en
coded by the Kif 1 b gene. Gene 1999;
239(1): 117-127. - Gong TW, Besirli CG, Lomax Ml.
MACF1 gene structure: a hybrid of
plectin and dystrophin. Mamm Ge
nome 2001; 12(11 ):852-861. - Cochrane. AHCPR Publication 1992;
92-0032:100-107. - Johnstone BM, Patuzzi R, Yates GK.
Basilar membrane measurements
and the travelling wave. Hear Res
1986:22:147-153. - von Bekesy G. Experiments in Hear
ing. New York: McGraw-Hill, 1960. - Lamm K, Arnold W. The effect of
prednisolone and non-steroidal anti-
inflammatory agents on the normal-
and noise-damaged guinea pig inner
ear. Hear Res 1998; 115(1-2): 149-61. - Minoda R, Izumikawa M, Kawamoto
K, Raphael Y. Strategies for replacing
lost cochlear hair cells. Neuroreport
2004;15(7):1089-92 - Fechter DL, Gearhart C, Shirwany
NA. Acrylonitrile potentiates noise-in
duced hearing loss in rat. JARO 2004;
5:90-98
София 2005